Del 2: Forbindelse af neurobiologien af udviklingsmæssig hjerneskade: Neuronal arborisation som en regulator af dysfunktion og potentielt terapeutisk mål
Mar 21, 2022
For flere oplysninger:ali.ma@wecistanche.com
Cistanche cistanche pulver gavner helbredet --neurobeskyttende effekt
4.3. Regulatoriske mekanismer for dendrit Arborisatin og rygsøjledannelse
Aktin og mikrotubuli bundtning og reorganisering er rygraden i dendritisk arborisering, der understøtter plasmamembranudvidelse. Actin er placeret ved kanterne af dendritter og driver udforskende aktivitet. Mikrotubuli danner midten af det dendritiske skaft og konsoliderer dette nydannede skaft. Den dynamiske proces med forlængelse, forgrening, tilbagetrækning samt orientering af grene koordineres af adskillige signalmekanismer. Disse signaleringsmekanismer er blevet beskrevet i detaljer af andre forfattere (se anmeldelser fra [1-3]) og vil blive opsummeret her og i tabel 1.

Actinmonomerpolymerisering tillader dannelsen af actin-filamenter, stabiliseret af mikrotubuli, der understøtter aksonal og dendritisk grenudvidelse fra indledende actinplastre (gennemgået af [1]). Aktin- og mikrotubulus-interaktioner i sig selv stabiliseres af tværbindingsproteiner såsom mikrotubuli-actin-tværbindingsfaktor (MACF1; [94]). Mens mikrotubuli-invasion af filipodia understøtter grendannelse, bidrager adskillelsen af mikrotubuli, reguleret af ubiquitin-protein-ligase 3a (Ube3a, også kaldet E6AP ubiquitin-protein-ligase), ligeledes til tilbagetrækningen af dendritiske grene [95]. Den dynamiske udvidelse og reorganisering af dendritiske grene er en meget aktivitetsafhængig proces; derfor kan dette hæmmes af processer, der påvirker ATP-produktionen. Som et eksempel vil afbrydelsen af Drp-afhængig fission hæmme produktionen af mitokondrier, der er små nok til at bevæge sig ind i dendritiske grene, og det har vist sig at resultere i den væsentlige svigt af primær forgrening i muse Purkinje-celler i lillehjernen (in vivo og in vitro) ) [96]. Ændringer i mikrotubulus transportsystemer kan også påvirke forgrening ved at ændre kapaciteten til normal actin og mikrotubulus organisation (f.eks. [97]). I forbindelse hermed er der en væsentlig afhængighed af proteintranslation; derfor påvirker ændringer i mRNA-transport og lokal proteintranslation ogsåneuronalarborization (anmeldt af [98]). Det skal bemærkes, at genet fragile X mental retardering 1 (Fmr1, genet primært forstyrret i fragilt X-syndrom) er en vigtig regulator af lokal mRNA-translation i dendritter (gennemgået af [99]).
Tabel 1. Ekstrinsiske regulatorer af dendritisk arborisering og rygsøjleudvikling.
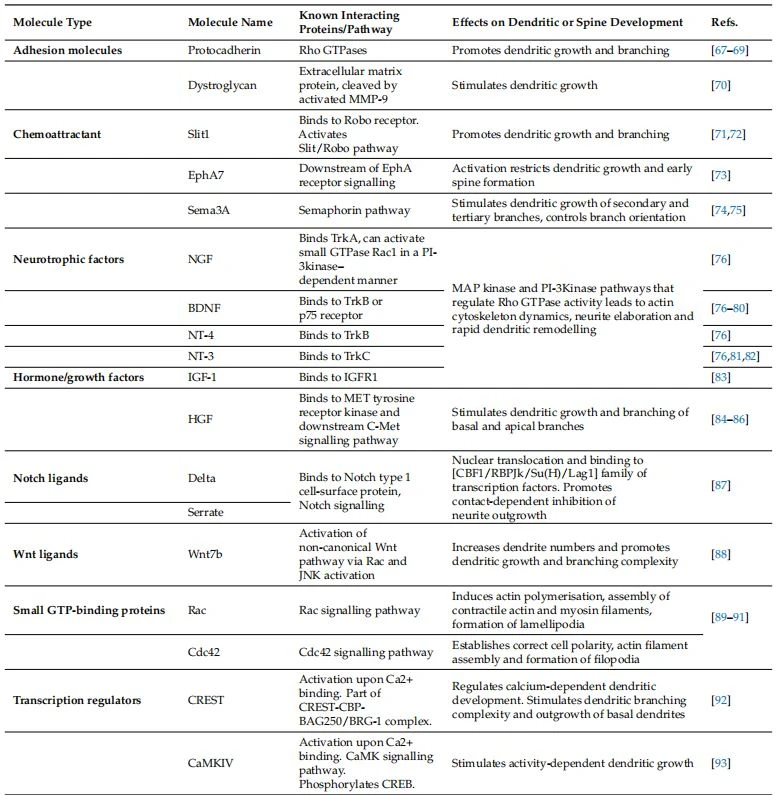
Forkortelser: Slit1—Spaltevejledningsligand 1, Epah7—ephrinreceptor A7, Sema3A—semaphorin 3A, NGF—nervevækstfaktor, BDNF—hjerneafledt neurotrofisk faktor, NT—neurotrofin, IGF1—insulinlignende vækstfaktor 1, HGF1—hepatocyt vækstfaktor 1, Rac-Rac-familie 1 lille GTPase 1, Cdc42-celledelingscyklus 42, TrK-tyrosinkinasereceptor, CREST-calcium-responsiv transaktivator, CaMKIV-calmodulin-afhængig proteinkinase IV, CREB-cAMP-respons element-binding protein.
Ekstrinsiske regulatorer af arborisering inkluderede kontaktafhængig signalering (celle-til-celle eller med den ekstracellulære matrix), udskilte kemoattraktante eller kemorafvisende molekyler og vækstfaktorer. Protocadheriner er en stor familie af molekyler, der dog er involveret i kontaktafhængig regulering af dendritisk arborisering (og aksonal forlængelse). Klyngede protocadheriner er specifikt blevet fundet at regulere arborisering via signalering gennem Rho GTPaser (gennemgået af [100]). En betinget knockout af y-protocadheriner i musehjernen resulterer i forstyrret dendritisk kompleksitet, selvom effekten af dette primært er relativt sent i kortikal udvikling, fra P18 til P28 [67]. Denne relativt forsinkede aldersafhængige effekt er særlig interessant, da protocadheriner også har vist sig at regulere dendrit-selvundgåelse i arbors, et fænomen, der tydeligt er afgrænset af P12 [69]. Andre proteiner, der regulerer celle-til-celle-kontakter, der påvirker dendritisk arborisering, omfatter dystroglycan, contactin 4 (CNTN4) og neurexin (NRXN) -neuroligin (NRLG) interaktioner. Dystroglycan, et ekstracellulært matrixprotein, har vist sig at stimulere væksten af dendritiske arbours i musehippocampusneuronerin vitro på en måde afhængig af celledelingskontrolprotein 42 (Cdc42) GTPase [70]. CNTN4, et protein forbundet med skizofreni og oftest fundet at ændre synaptisk funktion, har også vist sig at regulere arborisering af hippocampusneuroneri musen [101]. Men i dette tilfælde var effekten relativt lille, hvilket muligvis afspejlede CNTN4's primære rolle i synapseorganisationen og derfor det sene stadium, hvor det virker i udviklingen. Neurexin og neuroligin er adhæsionsproteiner, som også primært er forbundet med synaptisk dannelse på grund af deres respektive tilstedeværelse på axonterminaler og dendritiske rygsøjler. Det er blevet vist i musehjernen, at interaktioner mellem disse molekyler er vigtige for den indledende forbigående stabilisering af synapser, der kræver aktivitet for at stabilisere sig permanent [102]. Blokering af disse interaktioner resulterer i reduceret vækst af dendritiske arbor samt mindre synapsedannelse [102].
Udskilte kemoattraktanter, der regulerer dendritisk arborisering, omfatter semaphorin 3A (Sema3A), Slit-guideligand 1 (Slit1) og ephrin A7-receptor (EphA7). Sema3A, som er et kemorafvisende middel til axoner, virker som et kemoattraktant for dendritter, der understøtter vækst og orientering af den primære apikale dendrit [74] og er nødvendig for sekundær og tertiær forgrening [75]. Slit1 er en anden udskilt faktor, der i dette tilfælde arbejder gennem Robo-receptoren, der stimulerer dendritisk vækst og forgrening [71]. Interessant nok ser EphA7 ud til at være et andet regulatorisk molekyle, der har forskellige virkninger gennem udviklingen, da EphA7-signalering begrænser dendritisk vækst og tidlig rygsøjledannelse under tidlig udvikling (før P10 i musen), men fremmer dendritisk rygsøjledannelse på senere udviklingsstadier [54].
Familien af neurotrofiske faktorer, herunder nervevækstfaktor (NGF), hjerneafledt neurotropisk faktor (BDNF) og neurotrofin-3 og -4 (NT-3, NT-4 ), der har flere roller i at regulere hjernens udvikling og funktion, er også blevet identificeret som bidragende tilneuronalarborisering og synapsedannelse. Funktionerne af BDNF i denne sammenhæng er blevet mest udforsket og fundet at fremme dendritisk arborisering, primært via aktivering af tropomyosinreceptorkinase (Trk) B-receptoren (TrkB, gennemgået i detaljer af [56]). NT-3, der virker gennem TrkC-receptoren, har også vist sig at fremme arbor-vækst [81]. Moden BDNF og NT-3 har begge udviklingsspecifikke udtryk og synes primært at bidrage til de senere stadier af dendritisk ekspansion. I en elegant undersøgelse har Joo et al. (2014) viste, at faldende NT-3-signalering, afledt af præsynaptiskneuronerpå en aktivitetsafhængig måde, reduceret forlængelse af dendritter fra Purkinje-neuroner til pial-overfladen af musehjernen mellem P7 og P14 (hvilket resulterer i forstyrrelse, der fortsætter på lang sigt) [81]. Andre forskere har imidlertid vist, at kapaciteten til inhibering af NT-3 fra E21 til P7 i musen resulterer i kortikale neuroner med reducerede apikale dendritter ved P7 [56], hvilket tyder på, at de aldersspecifikke effekter kan være forskellige afhængigt af hjerneregionen eller NT-3-kilden. BDNFs handlinger på dendritisk udvikling er sværere at opsummere og kan være både konstitutive og aktivitetsafhængige [79]. Det er sandsynligt, at et molekyle så pleiotropt som BDNF har væsentlig kompartmentalisering af dets signal- og signalveje. Til støtte for denne idé er det for nylig blevet vist, ved hjælp af kompartmentaliserede kulturer af primære gnaverneuroner, at BDNF fra postsynaptiske mål er i stand til at binde til TrkB-receptorer på axoner og simulere dendritisk arborisering via en distinkt og kompleks intracellulær signalvej [78 ]. Hepatocytvækstfaktor (HGF) virker også gennem sin tyrosinkinasereceptor (Met i dette tilfælde), er vigtig til at stimulere mange udviklingshændelser og har vist sig at fremme dendritisk vækst og forgrening [78,84]. Hepatocytvækstfaktor (HGF) virker også gennem sin tyrosinkinasereceptor (Met i dette tilfælde), er vigtig, stimulerer mange udviklingshændelser og har vist sig at fremme dendritisk vækst og forgrening [84]. Dette er af særlig interesse, da HGF, som med mange andre vækstfaktorer, har vist sig at være reduceret hos ASD-patienter [86]. På samme måde er neureguliner, medlemmer af epidermal vækstfaktor (EGF)-familien, blevet forbundet med ændret synaptisk funktion ved neurologisk sygdom [86]. Som et eksempel har neuregulin 1-binding til EGF-receptoren ErbB4 vist sig at ændre dendritudvikling og synapsedannelse i glutamaterg og nogle GABAerge primære hippocampaleneuroner[103].
Mens nedstrøms signalveje ikke er blevet etableret for alle ydre regulatorer af arborisering, er der tydeligvis flere almindelige og interagerende veje, der i sidste ende regulerer actin og mikrotubulus organisation. BDNF er for eksempel veletableret til at ændre dendritisk arborisering via PI3K/Akt, cAMP respons-bindende protein (CREB) og andre tidlige responsgener såsom Arc og Rho-GTPases (gennemgået i [79]). Ras- og Rho-GTPaser kan sammen med mange proteinkinaser, f.eks. glykogensyntasekinase- 3 (GSK-3) og PI3K og CREB/CREB-bindende protein (CBP) betragtes som masterregulatorer af dendritisk arborisation (gennemgået i [2]). Disse molekyler har adskillige interaktioner og kan direkte eller indirekte påvirke cytoskeletomlejring. For eksempel phosphorylerer aktiv GSK-3 MACF1 og ændrer dens interaktioner med mikrotubuli og f-actin i forkanterne af udvidede neuritter [94]. Knockout-eksperimenter i musen tyder på, at MACF1 er vigtig gennem hele udviklingsprocessen, hvor knockout resulterer i øget antal primære dendritter, men en reduceret dendritisk længde og unormal dendritisk orientering, når den modificeres på forskellige udviklingsstadier in vitro, såvel som in vivo [ 94]. En alternativ metode til at modificere disse veje, og derfor dendritisk arborisering, er via transkriptionelle regulatorer og kromatin-omdannelsesproteiner. ARD1B er et eksempel på et kromatinreguleringsmolekyle, der påvirker produktionen af cfos og Arc (via phosphoryleringen af CREB), og mange nedstrømsveje, som bidrager til dendritisk forgrening [55]. Effekterne af at ændre ARD1B-binding i musehjernen (reduceret antal og længde af apikale og basale dendritter, væsentlig forstyrrelse i pial-kontakt, reduceret antal og øget umodenhed af dendritiske rygsøjler) er komplekse, hvilket afspejler de kombinerede handlinger af disse veje [55].
Mens mange af de ovenfor beskrevne mekanismer er aktivitetsuafhængige, er en stor del af den dynamiske fase af dendritisk reorganisering aktivitetsafhængig. Signalering efter neurotransmitters frigivelse og binding er essentiel for at stabilisere dendritisk vækst og rygsøjle- og synapsedannelse, hvor mange af signalmolekylerne og nedstrømsvejene beskrevet ovenfor er vigtige for den involverede cytoskeletomlægning (gennemgået i [2]). Sin et al. (2002) viste i det optiske tectum af Xenopus haletudser, at lysstimulering øgede dendritisk arborisering ved en mekanisme, der involverede glutamatreceptorsignalering, hvilket resulterede i reduceret RhoA-aktivitet og øget Rac- og Cdc42-signalering [89]. Interessant nok viste en efterfølgende undersøgelse af musen, der brugte mørk opdræt til at udforske aktivitetsafhængige effekter på dendritisk arborisering, lignende ændringer, men af en stærkt reduceret størrelsesorden [89,104]. Dette tyder på, at der kan være forskelle mellem arter eller hjerneregioner i bidraget fra aktivitetsafhængig kontrol eller arborisering. Afbrydelse i processen med signalering af neurotransmitter er derfor klart en bidragyder til neurologisk lidelse. Transfektion af en ASD-specifik mutation af GRIN2 (koder for GluN2B NMDA-receptorunderenheden) til en underpopulation af dyrkedeneuroneri nærvær af vildtype GluN2B viser, at selv små ændringer i tilstedeværelsen af nøglegener/proteiner kan påvirke dendritisk arborisering [104]. I dette eksempel var der ingen signifikant ændring i primære neuroner, men et væsentligt fald i forgrening og et fald i længden af grene på alle niveauer af det dendritiske træ [104].
Til dato har forskning i glial involvering i hjernens vellykkede ledningsføring fokuseret på virkningerne af astrocytter og mikroglia på synapseniveau, der specifikt regulerer dendritiske rygsøjlens antal og struktur og synapsedannelse, plasticitet og funktion. Der er væsentlig evidens for, at astrocytter påvirker synapsedannelse gennem en blanding af kontaktafhængige mekanismer og udskilte faktorer, herunder trombospondin, kolesterol og ApoE, hevin, transformerende vækstfaktor (TFG)- og chondroitinsulfatproteoglycan (gennemgået af [105,106]). Astrocyt -neuronalkontakt, reguleret af y-protocadherin, ser ud til at være vigtig for at lette tidlige faser af synapsedannelse [68]. Udskilt BDNF ser ud til at være en væsentlig drivkraft for mikroglial-påvirket dendritisk rygsøjledannelse, og der er også væsentlige beviser for mikroglial fagocytose af præ- og postsynaptiske elementer som en del af den normale beskæring af overskydende synaptiske forbindelser, især dem med lav aktivitet ( anmeldt af [107]). Fagocytose reguleres af klassiske immunsignalsystemer, såsom kemokiner (specifikt Cx3cr1) og komplement (inklusive C3 og C1q; [107-110]). Det er vigtigt, selvom der ligger uden for rammerne af denne gennemgang, er der også væsentlige data, der understøtter en rolle af mikroglia og astrocytter i reguleringen af synaptisk plasticitet i den voksne hjerne (gennemgået af [106,107]). Begrænsede data er tilgængelige om, hvorvidt disse gliaceller bidrager til tidligere stadier af neuronal udvikling, såsom dendritisk arborisering, selvom Yang et al. (2012) [82] har vist astrocytafhængig dendritisk arborisering i musehjernen. Interessant nok antydede denne undersøgelse, at astrocyt-knockout af Fmr1 var tilstrækkelig til at inducere den reducerede dendritiske arborisering, som et resultat af en overproduktion af NT-3 [82]. Nylige data tyder også på, at astrocytter kan regulereneuronalarborisering gennem lipoprotein receptor klasse A gentagelsesdomæne af lavdensitet lipoprotein receptor-relateret protein 4 (LRP4, [111]).
5. Potentielle beskyttende reguleringsmekanismer og farmakoterapier
5.1. Genetiske risikofaktorer, der ændrer neuronal arborisation og associerer med neuroudviklingsforstyrrelser
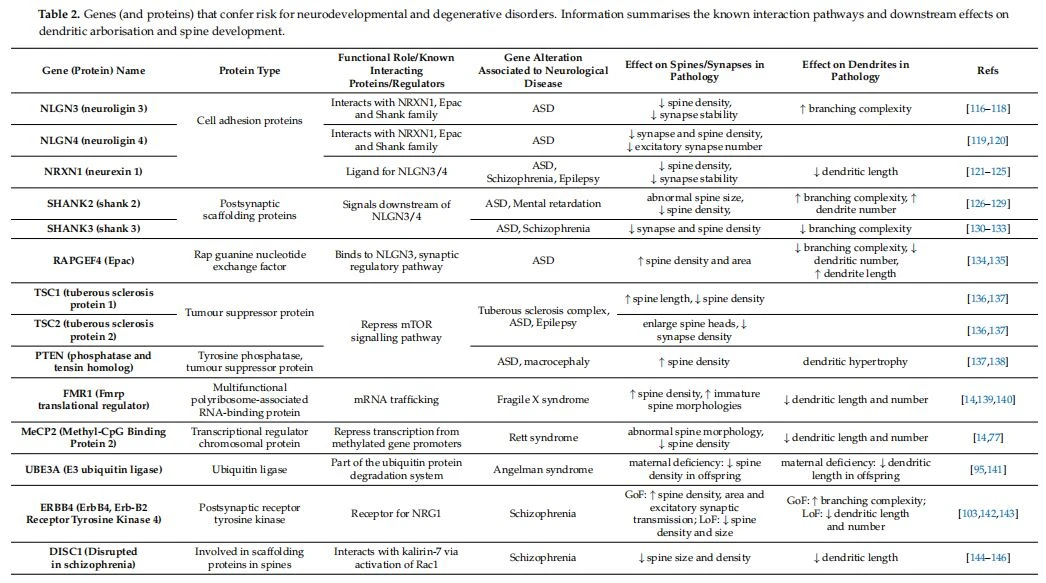
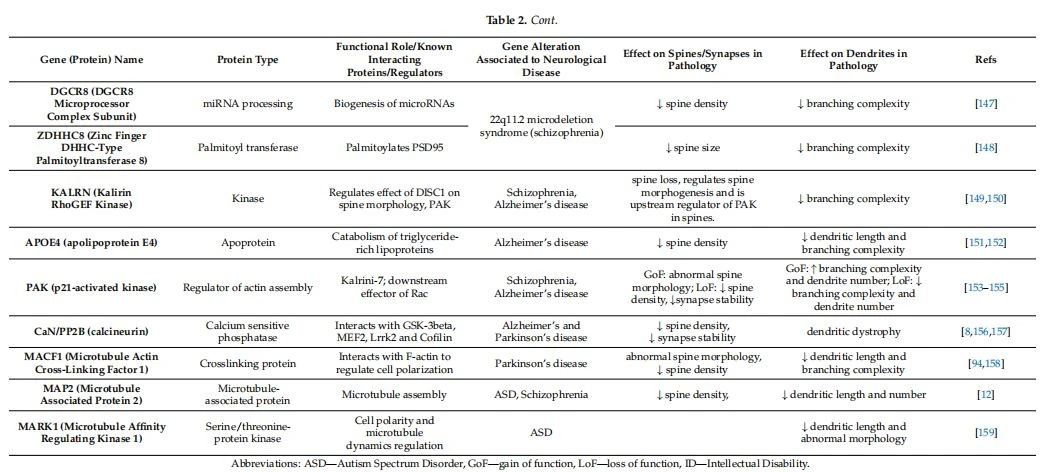
Den høje frekvens af dendrit- og rygsøjleabnormiteter i neuroudviklingsforstyrrelser skyldes en blanding af genetisk modtagelighed og et ændret miljø under udviklingen (muligvis afspejler en specifik skade i nogle tilfælde). Mange af de genetiske risikofaktorer forbundet med neuroudviklingsforstyrrelser (og neurodegeneration) interagerer med de molekylære regulatorer af dendritisk udvikling skitseret ovenfor og er opsummeret i tabel 2. Den klareste sammenhæng mellem genetik og neuroudviklingsforstyrrelser forekommer med kromosomale deletioner/duplikation (f.eks. Methyl CpG) bindingsprotein 2, MeCP2; 22q13 osv.); Men da så mange gener er påvirket, kan neurobiologien være svær at fjerne (gennemgået i [112]). MeCP2 er en transkriptionel regulator, der har betydelige effekter på hjernens udvikling. Virkningerne af dette gen er dosis- og kønsafhængige: Rett syndrom forekommer hos kvinder med en reduktion i MeCP2 [112-114], og duplikering af genet resulterer i en øget risiko for ASD og intellektuel funktionsnedsættelse, primært hos mænd (gennemgået i [113]). Med hensyn til arborisering resulterer mangel i MeCP2 i reducerede dendritiske grene, rygsøjlens tæthed og unormal rygsøjlemorfologi [113]. Interessant nok har det pro-inflammatoriske cytokin interleukin-1 vist sig at interagere med MeCP2 og påvirke dets funktion (gennemgået af [115]), en mulig mekanisme, hvorved genetiske og miljømæssige faktorer kunne interagere for at øge risikoen for neuroudviklingsforstyrrelser .