Forskelle i rodeksudater af Haloxylon Ammodendron på tværs af bevoksningsaldre og spirereaktionen af Cistanche Deserticola frø
Oct 08, 2026
Abstrakt
For at afklare, hvordan rod udskilles afHaloxylon ammodendron(saxaul) varierer på tværs af stand aldre og hvordanCistanche deserticola(Cistanche) frøspiring reagerer på disse forskelle, vi undersøgte saxualbevoksninger på 1, 3 og 6 år gamle i Alar-regionen, Xinjiang, Kina. Rodeksudatprøver blev indsamlet og analyseret ved hjælp af LC-MS-baseret ikke-målrettet metabolomik for at karakterisere sammensætningsforskelle. SideløbendeCistanchefrø blev behandlet med rodeksudater fra forskellige stand-age grupper, og frøspiringshastigheder blev bestemt.
Resultaterne viste signifikante forskelle mhtCistanchespirehastighed blandt behandlinger. Den 3-årige ekssudatbehandling af bevoksning gav den højeste spiringsgrad, signifikant højere end behandlinger med ekssudater fra 1- og 6-årige bevoksninger, hvorimod der ikke blev påvist nogen signifikant forskel mellem 1- og 6-årige behandlinger. Metabolomisk analyse viste, at de overordnede metaboliske profiler af saxusrodekssudater klart kunne skelnes mellem bestandsaldre, og det største antal differentielle metabolitter forekom mellem 3-årige og 1-årige bevoksninger. Differentielle metabolitter var hovedsageligt beriget med sukkerarter, vitamin B6-relaterede molekyler, flavonoider/phenoler og lipid-relaterede molekyler. De største vejforskelle involverede alfa-linolensyre-metabolisme, vitamin B6-metabolisme og flavonoid-relaterede veje. Yderligere screening ved at integrere spiringsfænotyper indikerede, at repræsentative differentielle træk i overensstemmelse med højere spiring også var koncentreret i disse metabolitkategorier og -veje.
Disse fund indikerer en klar kemisk differentiering af saxusrodekssudater blandt bevoksningsaldre og tyder på, at 3-årige saxaulbevoksninger kan udvikle en ekssudatkemisk baggrund, der er mere gunstig forCistanchefrøspiring. Resultaterne giver et teoretisk grundlag for at udvikle og optimereCistancheinokuleringsteknikker.
Nøgleord: Haloxylon ammodendron; Cistanche deserticola; rodeksudater; metabolomics; stand-age gradient

Indledning
Genopretning af tørre ørkenøkosystemer er ofte afhængig af etablering og fortsat udvidelse af nøglebuske [1-2].Haloxylon ammodendroner en typisk sandfikserende træart i det nordvestlige Kinas ørkenområder og spiller en enestående rolle i vindfang og sandfiksering, overfladestabilisering og vedligeholdelse af vegetationsstruktur [3-4]. Omkring forvaltningen og den økologiske funktionsforbedring af saxaul-plantager er der gradvist dannet en omfattende vej for "økologisk restaurering–skovforvaltning–ressourceudnyttelse" [5–7]. Blandt disse tilgange, inokuleringCistanche deserticolaunder saxaul-plantager betragtes som en repræsentativ udviklingsmodel, der balancerer økologiske og industrielle fordele [8-9].
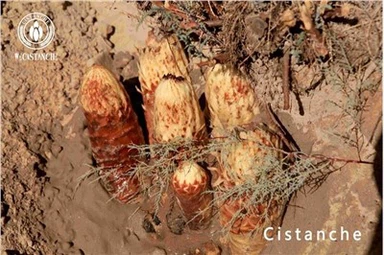
Cistanche-dyrkningsbase i Xinjiang, Kina

Cistanche deserticolahar bemærkelsesværdig økonomisk værdi og har stimuleret efterspørgslen efter kunstig dyrkning [10-11]. Men i storskalaproduktion svinger succesraten for parasitisk podning meget, hvilket påvirker stabiliteten og skalerbarheden af denne model [12].
I saxaul-Cistanche-systemet er frøspiring og tidlig værtsgenkendelse kritiske trin, der afgør, om et parasitisk forhold kan etableres [12-13].Cistanchefrø er ekstremt små, og spiringsinitiering afhænger stærkt af stimulering fra værtsrodeksudater [14-15]. Efter spiring skal frøplanter lokalisere værtsrødder inden for kort tid og gå ind i haustoriumdannelsesprocessen [16]. Derfor er intensiteten og sammensætningen af værtssignaler direkte afspejlet i spiringseffektivitet og efterfølgende parasitisme succesrater [16-17]. For obligate parasitære planter kan disse signaler også danne en tid-rum "kombination af forhold", der er mere tilbøjelige til at udløse spiring, dvs. et såkaldt spiringsvindue [18–19].
Saxaul-rodeksudater indeholder flere klasser af forbindelser, der kan deltage i værtsgenkendelses- og induktionsprocesser, såsom quinoner, organiske syrer og hormonrelaterede molekyler. Deres sammensætning er påvirket af både planteudviklingsstadiet og miljømæssig baggrund [20-21]. Tidligere undersøgelser tyder på, at rodeksudater varierer dynamisk på tværs af sæsoner eller vækststadier, hvilket yderligere kan føre til forskelle iCistanchespiringshastighed, haustoriumdannelseseffektivitet og parasitismeetablering [22]. Fra et plantageforvaltningsperspektiv svarer en stand-age gradient ofte til udvikling af værtsrodsystemer, akkumulering af kulstoftilførsler og stabilisering af rhizosfærens mikromiljø. Følgelig kan den ekssudatkemiske baggrund gennemgå systematiske justeringer [23-26].
Beviser er dog stadig utilstrækkelige med hensyn til, hvordan stand-age forskelle omformer det kemiske spektrum af saxaul-rodekssudater, og om sådanne ændringer kan producere kvantificerbare spiringsresponser. Dette hul begrænser også direkte kvantitativ vejledning til udvælgelse af værtsstandens alder og planlægning af nøgleledelsesperioder.
Metabolomics kan afsløre ændringer i rodeksudatmetabolitprofiler. Multivariate statistiske metoder såsom principal komponent analyse (PCA) og ortogonal partiel mindste kvadraters diskriminant analyse (OPLS-DA) kan bruges til at skelne grupper og identificere differentielle metabolitter [27-28]. Yderligere pathway-annotering og berigelsesanalyse hjælper med at fortolke retningen af biokemiske ændringer [29-30]. Ved synkront at sammenligne metabolomics output med funktionelle fænotyper (fx frøspiringshastighed), kan kemiske forskelle i ekssudater kædes sammen med målbare resultater - "om spiring fremmes, og i hvilket omfang" - hvilket giver mere direkte støtte til ledelses- og anvendelsesbeslutninger [31-33].
Derfor fokuserede denne undersøgelse på saxaul-bevoksninger i forskellige aldre i Alar-regionen på kanten af Taklamakan-ørkenen. Vi indsamlede rodeksudater fra forskellige bevoksningsaldre til LC-MS umålrettet metabolomisk profilering og udførteCistanchefrøspiringsassays under anvendelse af disse ekssudater som behandlinger. Vi undersøgte stand-age-drevne ændringer i rodeksudatmetabolitprofiler (overordnet adskillelse, differentiel metabolitscreening og pathwayberigelse) og matchede dem til forskelle i spiringshastighed. Undersøgelsen giver kvantitative referencer til forbedringCistancheinokuleringssucces og tilbyder empirisk metabolomisk bevis for kemiske interaktioner mellem værts- og parasitplanter i tørre områder.
1 Materialer og metoder
1.1 Studieområde
Undersøgelsesområdet er placeret i ørken-oase-overgangszonen i Alar City, på den nordlige kant af Taklamakan-ørkenen, Xinjiang, Kina. Regionen har et typisk varmt tempereret, ekstremt tørt klima, med stærk vind-sandaktivitet, knapt med nedbør og intens fordampning. Årlig gennemsnitsnedbør er 40,1-82,5 mm, mens årlig gennemsnitlig fordampning er 1876,6-2558,9 mm. Lys- og varmeressourcer er rigelige, og daglige temperaturforskelle er store. Overfladevegetationen er domineret af ørkenbuske og sparsomme urter. Saxaul er den vigtigste konstruktive art, der bruges til lokale vindfang og sandfikseringsbælter, og regionen er også et vigtigt produktionsområde for saxaul-podetCistanche.
1.2 Prøveindsamling og -behandling
Prøveudtagning blev udført i april 2025 (forår) i Alar-regionen. Rodekssudater og synkrone jordprøver blev indsamlet fra saxaulbevoksninger i alderen 1, 3 og 6 år.Cistanchefrøspiringseksperimenter blev udført efter prøveudtagning.
1-, 3- og 6-årige stand-age behandlinger blev udpeget som henholdsvis AO, AT og AS. Hver behandling inkluderede tre biologiske replikater, mærket AO1-AO3, AT1-AT3 og AS1-AS3. De 1-årige stande repræsenterer den tidlige etableringsfase; 3-årige bevoksninger repræsenterer et kraftigt vækststadium med aktive rhizosfæreprocesser; og 6-års stande repræsenterer et relativt stabilt stadie. Baseret på forskelle i værtens udviklingsstadier sammenlignede vi kemisk variation af rodeksudat på tværs af bevoksningsaldre og dets forhold tilCistanchefrøspiring.
1.2.1 Indsamling af rodeksudat
Rodekssudater blev opsamlet ved anvendelse af en in situ feltekstraktionsmetode. I hvert stand-age plot blev saxaul-individer med lignende vækststatus og ingen tydelige skadedyr eller sygdomme udvalgt. Tre planter blev udtaget pr. bestandsalder som biologiske replikater. Rødder blev omhyggeligt udgravet omkring plantebasen, hvilket minimerer mekanisk skade. Vedhæftende jord blev forsigtigt fjernet; rødder blev skyllet med deioniseret vand; derefter blev rødderne pakket i sække og genbegravet in situ til en 24 timers forbehandling.
Efter forbehandling blev rødderne fjernet og forsigtigt skyllet igen med deioniseret vand. Rodsegmenter blev pakket ind med fugtet filterpapir for at opretholde fugtigheden, anbragt i 50 ml centrifugerør, forseglet med parafilm og genbegravet in situ. Efter 24 timer blev de filterpapirindpakkede rodsegmenter opsamlet, holdt på is og transporteret til laboratoriet.
I laboratoriet blev 100 ml deioniseret vand tilsat, og prøver blev rystet i 30 minutter til ekstraktion. Ekstraktet blev vakuumfiltreret, koncentreret under reduceret tryk og opbevaret ved -80 grader til efterfølgende LC-MS ikke-målrettede metabolomiske analyser. De samme ekstrakter blev også brugt til frøbehandlingsassays.
1.2.2 Jordprøveudtagning og bestemmelse af jordbunds fysisk-kemiske egenskaber
Jordprøver blev indsamlet samtidigt med rodeksudater. Prøver blev lufttørret naturligt, urenheder fjernet og ledt gennem en 2 mm sigte til fysisk-kemiske målinger, herunder pH, totalt nitrogen (TN), totalt fosfor (TP), totalt kalium (TK), alkalihydrolyserbart nitrogen (AN), tilgængeligt fosfor (AP), tilgængeligt kalium (AK) og organisk materiale i jorden (SOM). Detaljerede metoder er angivet i tabel 1.
Tabel 1. Jordbunds fysisk-kemiske indikatorer og analysemetoder
| Indikator | Forkortelse | Analytisk metode |
|---|---|---|
| pH | - | Potentiometrisk metode |
| Total nitrogen | TN | Kjeldahl metode |
| Total fosfor | TP | NaOH-fusion - molybdæn-antimon-kolorimetri (spektrofotometri) |
| Total kalium | TK | NaOH fusionsmetode |
| Alkali-hydrolyserbart nitrogen | AN | Alkalisk diffusionsmetode |
| Tilgængelig fosfor | AP | Spektrofotometrisk metode |
| Tilgængelig kalium | AK | Ammoniumacetat ekstraktionsmetode |
| Jordens organiske stof | SOM | Kaliumdichromat-oxidationsmetode |
1.3 LC–MS Umålrettet Metabolomics og Data Preprocessing
Rodeksudatprøver blev analyseret ved hjælp af ultrahøjtydende væskekromatografi-højopløsningsmassespektrometri (UHPLC-HRMS) i både positiv og negativ elektrosprayioniseringstilstand. Rådata blev udsat for peak ekstraktion, retention-time korrektion, peak justering, manglende værdi håndtering og normalisering forud for downstream analyser.
Kvalitetskontrolprøver og blindprøver blev brugt til at fjerne baggrundsinterferenstoppe og funktioner med dårlig reproducerbarhed for at forbedre datastabilitet og sammenlignelighed. Metabolitidentifikation og annotering var hovedsageligt baseret på nøjagtig masse, retentionstid og MS/MS-fragmenteringsmønstre, matchet til HMDB, METLIN, MassBank og kortlagt til KEGG til analyse af forløbet. Annoteringsresultater blev filtreret efter matchende konfidens, og kemisk klassekategorisering og opsummering på vejniveau blev udført.
1.4 CistancheFrøspiringseksperiment
1.4.1 Frøforbehandling
SamletCistanchefrø blev anbragt ved 30 grader i en inkubator med konstant temperatur i 1 time. Frøkappe blev fjernet, og frø blev overfladesteriliseret i 2% natriumhypochlorit i 15 minutter, skyllet tre gange med sterilt destilleret vand og duppet tørre på sterilt filterpapir.
1.4.2 Præ-eksperiment og bestemmelse af basale pro-spiringsbetingelser
For at sikre sammenlignelighed mellem behandlinger med ekssudater fra forskellige bevoksningsaldre, blev der udført et præeksperiment for at screene tilsætningsbetingelserne for gibberellin og fluridon. Baseret på præ-testresultater blev en kombination med bedre spireevne og stabil repeterbarhed valgt som den basale forspiringsbetingelse: tilsætning af 1 mL 1 g·L−1^{-1}−1 gibberellin og 1 mL 10 mg·L−1^{-1}−1 fluridon.
1.4.3 Behandlinger med rodeksudater fra forskellige bevoksningsaldre
Under de forenede basale spiringsbetingelser blev lige store mængder rodeksudatprøver fra 1-, 3- og 6-årige saxaulbevoksninger tilsat for at sammenligneCistanchefrøspiringsresponser. Denne undersøgelse fokuserede på behandlingseffekter af ekssudater fra forskellige bevoksningsaldre og inkluderede ikke en ekssudatkoncentrationsgradient.
For hver behandling blev 50 forbehandlede frø anbragt i petriskåle ved anvendelse af filterpapirmetoden og inkuberet ved 25 grader i mørke. Spiringshastigheden blev registreret efter 10 dage. En radikel (kimrør) længde > 1 mm blev brugt som spirekriteriet. Hver behandling havde tre gentagelser.
1.5 Statistisk analyse
Efter forbehandling og normalisering blev metabolomiske data analyseret ved hjælp af hierarkisk klyngeanalyse, PCA og OPLS-DA for at evaluere overordnede forskelle mellem standsaldre. Differentielle metabolitter blev screenet under anvendelse af VIP > 1 og P < 0,05. Venn-diagrammer, vulkanplot, clustered heatmaps og KEGG pathway-berigelsesanalyser blev brugt til at fortolke store differentielle metaboliske funktioner.
Cistanchefrøspiringshastigheder blev analyseret ved envejs ANOVA; post hoc sammenligninger blev udført ved hjælp af Tukeys test. Signifikansniveauet blev sat til =0.05\\alpha=0.05 =0.05.
2 Resultater og analyse
2.1 Jordens fysisk-kemiske egenskaber
Jordens fysisk-kemiske indikatorer viste en vis variation mellem forskellige bevoksningsaldre, men den samlede størrelse af ændringen var begrænset (tabel 2). Jorden var basisk i alle parceller med pH-værdier fra 8,35 til 8,83. Indholdet af totalkvælstof, totalfosfor, totalkalium og organisk stof var generelt lavt. De 3-årige stande havde relativt højere TN, TK, SOM og AK; 6-års standene havde lidt højere TP og AP; og 1-års standene havde relativt højere AN. Samlet set svingede jordbaggrunden noget på tværs af bevoksningsaldre uden en konsekvent retningsbestemt tendens. Derfor fokuserede efterfølgende analyser hovedsageligt på rodeksudatforskelle og deres overensstemmelse medCistanchefrøspiringsresponser.
Tabel 2. Jordens fysisk-kemiske egenskaber
| Behandling | pH | TN (g·kg⁻¹) | TP (g·kg⁻¹) | TK (g·kg⁻¹) | AN (mg·kg⁻¹) | AP (mg·kg⁻¹) | AK (mg·kg⁻¹) | SOM (g·kg⁻¹) |
|---|---|---|---|---|---|---|---|---|
| AO | 8.83 | 0.129 | 0.591 | 6.76 | 11.672 | 7.171 | 159.783 | 2.660 |
| PÅ | 8.35 | 0.165 | 0.604 | 10.69 | 9.114 | 7.381 | 377.900 | 3.186 |
| SOM | 8.82 | 0.101 | 0.649 | 7.08 | 10.697 | 8.086 | 185.962 | 2.547 |
Bemærkninger:AO=1-årstand; AT=3-års stand; AS=6-års stand.
2.2 Virkninger af rodeksudater fra forskellige bevoksningsaldre påCistancheFrøspiring
Cistanchefrøspiringshastigheder var signifikant forskellige mellem behandlinger med rodeksudater fra forskellige bestandsaldre (figur 1). Den 3-årige ekssudatbehandling (AT) gav den højeste spiringsrate på 84,66 % ± 1,15 %. De 1-årige (AO) og 6-årige (AS) behandlinger gav henholdsvis 80,89 % ± 2,04 % og 80,67 % ± 0,67 %. Envejs ANOVA indikerede en signifikant forskel mellem behandlinger (P=0.022). Tukeys post hoc-test viste, at AT var signifikant højere end AO (P=0.038) og AS (P=0.030), mens AO og AS ikke adskilte sig signifikant (P=0.980).

Fig. 1 Forskelle i spiringshastighed for Cistanche deserticola frø under rodeksudatbehandlinger fra Haloxylon ammodendron bevoksninger i forskellige aldre
Disse resultater tyder på, at i løbet af forårets vinduesperiode svarer rodeksudater fra forskellige bevoksningsaldre til klare forskelle iCistanchefrøspiringsresponser og ekssudater fra 3-årige bevoksninger viser stærkere spirefremmende potentiale. For yderligere at forklare disse forskelle analyserede vi derefter den overordnede metabolitprofilseparation og differentielle metaboliske funktioner.
2.3 Overordnede forskelle i rodeksudater på tværs af standsaldre
2.3.1 Overordnet adskillelse af rodeksudatmetaboliske profiler
Metaboliske profiler af rodeksudater var tydeligt differentieret mellem bevoksningsaldre. Det globale varmekort (figur 2) viste, at de fleste prøver inden for den samme bestandsalder klyngede sig på den samme gren, hvilket indikerer god konsistens inden for gruppen. Prøver fra forskellige bevoksningsaldre viste relativt klare grupperingsmønstre, hvilket tyder på, at ekssudatsammensætningen blev reorganiseret med bevoksningsalderen.
PCA-resultater (figur 3) indikerede, at de to første hovedkomponenter forklarede 46,5 % af den samlede varians; PC1 og PC2 forklarede henholdsvis 32,1 % og 14,4 %. Prøver fra forskellige standsaldre viste skelnelige fordelinger i ordinationsrummet. Især viste 1-årige prøver en overordnet fordelingstendens, der var forskellig fra 3- og 6-årige prøver, hvilket indikerer strukturel differentiering i den samlede ekssudatsammensætning med bestandsalder. Selvom der stadig var en vis variation inden for gruppen, var den stand-alders-relaterede adskillelsestendens klar.

2.3.2 Diskrimination mellem grupper
For yderligere at sammenligne forskelle mellem bevoksningsaldre blev parvise sammenligninger (AO vs. AT, AO vs. AS, AT vs. AS) udført baseret på negativ-ion-mode-data (figur 4). Alle tre sammenligninger viste tydelig adskillelse og god klyngedannelse af biologiske replikater, hvilket viste stabile metaboliske forskelle mellem standsalder.
Alle OPLS-DA-modeller udviste god tilpasning og forudsigelig ydeevne, med R2Y=0.998–1.000 og Q2=0.663–0.873, hvilket indikerer robust skelnen mellem rodeksudatprøver blandt bestandsaldre. Adskillelsen var mest udtalt mellem AS og AO, hvilket tyder på den største samlede sammensætningsforskel mellem 1- og 6-årige bevoksningsekssudater. AT viste også stabil adskillelse fra AO og AS, hvilket indikerer, at 3-årige ekssudater allerede har distinkte stadiespecifikke karakteristika. Overordnet set var rodeksudatmetabolitprofiler meget skelnelige på tværs af bestandsaldre, hvilket understøttede nedstrømsanalyser af differentielle metabolitter og deres kobling til spiringsforskelle.

Fig. 3 Hovedkomponentanalyse

Fig
2.4 Vigtigste, differentielle metaboliske egenskaber ved Saxaul-rodeksudater
2.4.1 Antallet af differentielle metabolitter og delte funktioner
Hver parvis sammenligning mellem bestandsaldre indeholdt et vist antal differentielle metabolitter (figur 5). Det største antal forekom i AT vs. AO, med 31 differentielle metabolitter. AS vs. AO og AS vs. AT havde henholdsvis 24 og 18 differentielle metabolitter, hvilket indikerer, at forskellene mellem 3-årige og 1-årige ekssudater var de mest udtalte.
Syv differentielle metabolitter blev delt på tværs af alle tre sammenligninger, hvilket indikerer et relativt stabilt sæt metabolitter, der reagerer på ændringer i stand-age. I mellemtiden bibeholdt hver sammenligning nogle unikke differentielle metabolitter, hvilket afspejler klare stadiespecifikke træk i ekssudatændringer. Overordnet set blev forskelle i stand-alder ikke kun udtrykt i metabolittællinger, men også i en struktur, hvor delte og stadiespecifikke differentielle metabolitter eksisterede side om side.

Fig. 5 Venn-diagram over differentielle metabolitter i rodeksudater af Haloxylon ammodendron på tværs af bestandsaldre
2.4.2 Ændringsmønstre i differentielle metabolitter
Vulkanplot og clustered heatmaps indikerede modulære mønstre for ændringer i rodeksudater på tværs af bevoksningsaldre. I alle tre sammenligninger (figur 6) var signifikante metabolitter fordelt på begge sider af vulkanplot, hvilket indikerer både op- og nedregulerede metabolitter blandt bestandsalder. Mange væsentlige træk viste store foldændringer og stærk betydning, hvilket tyder på, at gruppeadskillelse i fællesskab var drevet af et sæt koncentrerede metaboliske skift snarere end spredte individuelle variationer.
Baseret på metabolitannoteringer blev store differentialkategorier koncentreret i sukkerarter, vitamin B6-relaterede molekyler, flavonoider/phenoler og lipid-relaterede molekyler. Repræsentative differentielle metabolitter omfattede saccharose, isopyridoxal, linolenat (18:3), PA 40:7, methylgibberellin A9 og secologanin.
AT vs. AO indeholdt det største antal differentielle metabolitter, hvilket tyder på et stærkere skift af kemisk output fra 1-årig til 3-årig stands. Forskellene mellem AT og AS var også stabile, hvilket indikerer, at den 3-årige fase ikke blot er en lineær overgang mellem 1-årige og 6-årige stande, men har distinkte scenespecifikke træk. Samlet set afspejlede forskelle mellem bevoksningsalder hovedsageligt koordinerede ændringer blandt ovennævnte metabolitkategorier snarere end isolerede fluktuationer i enkelte metabolitter.

Fig. 6 Vulkanplot af differentielle metabolitter i rodeksudater af Haloxylon ammodendron på tværs af bestandsaldre
Et varmekort over repræsentative differentielle metabolitter (figur 7) viste yderligere god klyngedannelse af biologiske replikater og klar adskillelse mellem stand-aldre, hvilket indikerer, at stand-alders forskelle blev afspejlet direkte i differentialmetabolitprofiler. Den 3-årige gruppe (AT) viste delvise ligheder med AO eller AS på tværs af forskellige metabolitmoduler, men beholdt sine egne distinkte træk. Nogle metabolitter toppede i AT, mens de forblev lavere i AO og AS; andre var lavere i AT, men højere i AO eller AS. Det 3-årige trin fulgte således ikke et simpelt monotont stignings-/faldsmønster, men derimod en klar trinspecifik omlægning. Navnlig vitamin B6-relaterede molekyler (f.eks. isopyridoxal, pyridoxat), flavonoider/phenoler (f.eks. quercetin, isoquercitrin, scopolin) og lipid-relaterede molekyler (f.eks. linolenat 18:3, PA 40:7, FAO2 modulære mønstre, konsistente med FAO 18-mønstret):1: diskriminationsanalyser.

Fig. 7 Hierarkisk klyngevarmekort over repræsentative differentielle metabolitter
2.4.3 Involverede vigtige metaboliske veje
KEGG pathway-analyse indikerede, at stand-age-relaterede forskelle i saxaul-rodekssudater primært involverede lipidmetabolisme, vitamin/cofaktor-metabolisme og flavonoid-relateret sekundær metabolisme (figur 8). Alfa-linolensyre-metabolisme optrådte med en relativt høj pathway-impact-faktor, hvilket repræsenterede en fremtrædende lipid-relateret vej under stand-age forskelle. Vitamin B6-metabolisme viste også høj betydning, hvilket tyder på væsentlige ændringer i cofaktor-relaterede og redox-homeostase-relaterede små molekyler.
I sekundær metabolisme blev flavonoid-biosyntese, flavon- og flavonol-biosyntese og nedbrydning af flavonoider alle beriget, hvilket indikerer, at phenol-flavonoid-modulet er en væsentlig retning for stand-age variation. Derudover viste aromatiske forbindelser, såsom benzoat-nedbrydning, visse reaktioner. Overordnet set var alders-drevne forskelle i saxaul-rodeksudater hovedsageligt struktureret omkring lipidmetabolisme, vitamin B6-metabolisme og flavonoid/phenolisk sekundær metabolisme.
2.5 Repræsentative differentielle metabolitter screenet baseret på spiringsfænotyper
For yderligere at tydeliggøre sammenhænge mellem ekssudatforskelle ogCistanchespiringsfænotyper, differentielle metabolitter blev integreret med spiringshastighedsmønstre. Spiringsassays viste, at AT-behandlingen havde den højeste spiringshastighed, hvorimod AO og AS var lavere og ikke adskilte sig signifikant. Dette mønster tyder på, at 3-årige saxaul-eksudater kan indeholde kemiske komponenter, der er mere gunstige at fremmeCistanchefrøspiring.
Baseret på denne fænotype prioriterede vi metabolitter, der (i) optrådte i både AT vs. AO og AT vs. AS sammenligninger og (ii) udviste ændringstendenser i overensstemmelse med højere spiring (tabel 3). Disse kandidatdifferentielle egenskaber var hovedsageligt koncentreret i sukkerarter, lipid-relaterede molekyler, vitamin B6-relaterede molekyler og flavonoider/phenoler og var forbundet med alfa-linolensyre-metabolisme, vitamin B6-metabolisme og flavonoid-relaterede veje. Disse resultater indikerer tydelig kategoriklynger blandt kandidatmetabolske egenskaber i overensstemmelse med højere spiring, hvilket tyder på, at disse metabolitter eller relaterede veje kan bidrage til spiringsfænotypen.

Fig. 8 Boblediagram over faktorer, der påvirker stofskiftet
Fane. 3 Overensstemmelse mellem forskellige træk ved rodeksudater fra Haloxylon ammodendron-bevoksninger i forskellige aldre og frøspiring af Cistanche deserticola
| Sammenligningsgruppe | Spiringsresponstype | Vigtigste differentialkategorier | Forskelskarakteristika | Repræsentative differentielle metabolitter |
|---|---|---|---|---|
| AT vs AO | Spirehastighed iAT højereendAO | Sukker, Vitamin B6-relateret, Flavonoider/phenolsyrer, Lipider | Betydelig modulopbygningi ekssudater kl3-årigstand alder | saccharose; Isopyridoxal; Pyridoxat; Quercetin; Isoquercitrin; Linolenat (18:3) |
| AS vs AT | Spirehastighed iAS lavereendPÅ | Sukker, flavonoider, gibberelliner | Differentiering mellem6-årog3-årigstår vedsignaleringogsekundært stofskifteniveauer | saccharose; Isoquercitrin; Methylgibberellin A9 |
| AS vs AO | Spiringshastighedsforskelikke væsentlig | Vitamin B6-relateret, Lipider | Store stofskifteforskellemellem1-årog6-årstår, meningen væsentlig spiringsforskel | Isopyridoxal osv. |
3 Diskussion
3.1 Standalder driver kemisk differentiering af Saxaul-rodeksudater
Planterødder er ikke statiske; de tilpasser sig dynamisk med udviklingsstadiet, ressourceallokering og rhizosfærens miljøændringer. McLaughlin et al. [22] viste, at rodeksudater varierer betydeligt på tværs af plantearter og tidsskalaer, hvilket indikerer en stærk spatiotemporal dynamik. Chen et al. [23] rapporterede endvidere, at både træers alder og årstid signifikant ændrer rodudsivningsstrategier og metabolitsammensætning i kinesisk granplantager, hvilket viser tydelige alderstrinsforskelle i metaboliske output. Disse undersøgelser understøtter et fysiologisk-økologisk grundlag for udviklingsstadie-drevet differentiering af rodeksudatkemi.
I denne undersøgelse viste saxaulrodekssudater tydelig differentiering mellem bestandsaldre på det overordnede metabolitprofilniveau. Heatmap clustering, PCA og OPLS-DA demonstrerede alle stabil adskillelse blandt bevoksningsaldre, hvilket indikerer, at bevoksningsalder kan drive fasespecifik kemisk reorganisering af saxaulrodekssudater. Dette stemmer overens med eksisterende viden om, at plantevækststadiet påvirker ekssudatsammensætningen, og antyder, at i saxaul-Cistanche-værtssystemet kan stand-age variation være en vigtig økologisk faktor, der former baggrunden for rodafledte signaler.
Desuden svarer aldersændringer ikke kun til værtsudviklingsstadiet, men også til skift i rhizosfærens miljømæssige baggrund. Jordens næringsstofniveauer, pH, organisk materiale og saltholdighedsforhold kan påvirke plantenæringsoptagelsen, kulstoftildelingsmønstre og rhizosfærens stabilitet og derved yderligere regulere sammensætningen og frigivelsesprocesserne af rodeksudater.
3.2 Eksudater fra 3-årig Saxaul svarer til højereCistancheFrøspiringshastigheder
Frøspiring af parasitære planter er meget afhængig af værts-afledte kemiske signaler. Nelson [16] bemærkede, at rodparasitære planter i Orobanchaceae typisk er afhængige af værtsrodfrigivne signalmolekyler for at detektere værtens tilstedeværelse og initiere spiring; sådan "værtsinduceret spiring" er en vigtig adaptiv mekanisme.
I denne undersøgelse,Cistanchefrøspiringshastigheden var højest under den 3-årige saxaul-eksudatbehandling, signifikant højere end behandlinger med 1- og 6-årige ekssudater, mens der ikke blev observeret nogen signifikant forskel mellem 1- og 6-årige behandlinger. Dette indikerer, at forskellige stand-age værter sandsynligvis ikke blot giver forskellige mængder af ekssudater, men kemisk forskellige spirefremmende baggrunde. Det faktum, at AT vs. AO havde de mest differentielle metabolitter, tyder på, at kemisk reorganisering fra 1-årige til 3-årige bevoksninger var den største, i overensstemmelse med retningen af højere spiring.
Dette mønster kan relatere til forskelle i vækststadier i saxaul og tilsvarende ressourceallokeringsstrategier. Et-årig saxaul er på et tidligt etableringsstadium, hvor planterne ikke er fuldt stabiliserede, rodsystemer og ressourceopsamling er relativt begrænsede, og metaboliske output kan være mere fokuseret på vedligeholdelse af selvvækst. Seks-årig saxaul er i et relativt modent stadium, hvor ressourceallokering kan skifte mod vedligeholdelse, strukturel stabilitet og miljøtilpasning, hvilket fører til mere stabile ekssudationsstrategier. I modsætning hertil er 3-årig saxaul generelt i et kraftigt vækststadium med mere aktiv rodudvidelse, næringsstofoptagelse og underjordisk metabolisme, hvilket gør det mere sandsynligt, at den danner en rigere og mere variabel rodeksudatprofil. På dette grundlag kan den udtalte metabolit-reorganisering og højere spiringshastighed i den 3-årige behandling afspejle et mere gunstigt rhizosfære-signalmiljø til at initiereCistanchefrøspiring i forårsvindueperioden.
3.3 Vigtigste, differentielle metaboliske egenskaber i overensstemmelse med spiringsresponser
Metabolomics afslører effektivt metabolitprofilændringer i komplekse prøver. Når den er integreret med analyse af pathway-berigelse, muliggør den identifikation af større ændringsretninger på systemniveau. Tidligere undersøgelser [31-33] tyder på, at kombination af metabolomiske resultater med funktionelle fænotyper såsom frøspiring hjælper med at målrette kandidatmetabolitter eller veje i overensstemmelse med fænotypiske ændringer. For rodeksudater er en "fænotype-først, metabolit-sporing"-strategi især nyttig til at identificere kandidat-metaboliske træk forbundet med specifikke biologiske effekter.
I denne undersøgelse viste fænotype-guidet screening, at repræsentative differentielle træk i overensstemmelse med den højere spiringshastighed i den 3-årige behandling hovedsageligt var koncentreret i sukkerarter, vitamin B6-relaterede molekyler, flavonoider/phenoler og lipid-relaterede molekyler, der involverer alfa-linolensyre-metabolisme, vitamin B6-metabolisme, rel- og B6-vitamin-metabolisme. Mekanistisk kan sukkerarter afspejle ændringer i rhizosfærens kulstofforsyning og -allokering; lipid-relaterede molekyler kan relateres til membranlipid-omdannelse og stress-signalregulering; flavonoider/phenoler kan deltage i vært-parasit-genkendelse og rhizosfære-signaltransmission; og vitamin B6-relaterede molekyler kan være forbundet med metabolisk homeostase og stressbuffer. Disse metaboliske kategorier viste koordinerede ændringer i AT-gruppen.
Cistanche-relateret forskning indikerer, at værts-afledte phenolsyrer kan påvirke induktionsprocesser, og phenoliske/aromatiske sekundære metabolitter i værtsrødder kan spille roller i parasitiske reaktioner [14]. Selvom denne undersøgelse ikke direkte kan bevise, at en enkelt metabolit er den afgørende faktor, der driver forbedret spiring, tyder de kategori-grupperede ændringer, der er observeret i 3-års gruppen, på, at den spiringsfremmende fordel mere sandsynligt stammer fra en koordineret omorganisering af flere metabolitklasser, der danner en sammensat kemisk baggrund, snarere end en utilsigtet stigning af et enkelt molekyle.
3.4 Praktiske implikationer og undersøgelsesbegrænsninger
Fra et produktions-praksis perspektiv tyder resultaterne på, at i løbet af forårets vinduesperiode kan 3-årig saxaul have bedre potentiale forCistanchepodning, hvilket giver en reference til udvælgelse af værtsbevoksning i underskovCistanchedyrkning og mulige retninger for teknisk udvikling for at forbedre podningssuccesen.
Denne undersøgelse er dog baseret på en enkelt forårsprøvetagning, og konklusionerne afspejler hovedsageligt sammenhænge under forårsvinduet; direkte ekstrapolering til hele året er endnu ikke understøttet. Derudover forbliver jordens baggrunds rolle i udformningen af ekssudatmetabolittræk stort set inferentiel og bør valideres yderligere via korrelationsanalyser, kontrollerede eksperimenter eller multi-omics-tilgange. Ikke-målrettet metabolomics har også begrænsninger såsom isomerinterferens og begrænset identifikationssikkerhed for nogle metabolitter. Derfor bør lipid-relaterede, vitamin B6-relaterede og flavonoid/phenoliske molekyler betragtes som kandidatretninger snarere end fuldt bekræftede nøgleinduktionsfaktorer. Endelig er praktiske podningsresultater påvirket af flere faktorer, herunder parasitisk etablering, haustoriumdannelse, efterfølgende vækst, markvand-saltforhold og forvaltningspraksis. Der er behov for yderligere arbejde, der kombinerer feltpodningsforsøg, undersøgelser af parasitismeetablering og målrettet validering af nøglekandidatmetabolitter for at styrke oversættelsen til produktion i den virkelige verden.
4 Konklusioner
Kemisk reorganisering af saxaul-rodeksudatsammensætning på tværs af bevoksningsaldre svarede klart til forskelle iCistanchefrøspiringsresponser, der fremhæver vigtigheden af værtsudviklingsstadiet i reguleringen af parasitære frøspiringsfænotyper. I april afveg rodekssudatmetaboliske profiler markant mellem bestandsaldre. De 3-årige saxaul-ekssudater viste de mest udtalte forskelle og svarede til de højesteCistanchefrøspiringshastighed. Repræsentative differentielle træk i overensstemmelse med højere spiring var hovedsageligt koncentreret i sukkerarter, vitamin B6-relaterede molekyler, flavonoider/phenoler og lipid-relaterede molekyler, der involverer alfa-linolensyre-metabolisme, vitamin B6-metabolisme og flavonoid-relaterede veje. Forholdet mellem stand-alder-ekssudat-spiring fulgte ikke en simpel lineær forbedring; mellemstandsalder var mere tilbøjelige til at danne en kemisk baggrund i overensstemmelse med højere spiringsrespons.
Forfatterbidrag
Zhao Zhen: konceptualisering, metodologi, undersøgelse, datakuration, dataanalyse, udarbejdelse, visualisering.
Fan Jinglong: metodik, gennemgang og redigering, visualisering, supervision, projektadministration, anskaffelse af finansiering.
Dong Weikang: undersøgelse, datakurering.
Zhou Zhibin: ressourcer, tilsyn, finansiering erhvervelse.
Li Bingwen, Wang Shijie: metodologi, ressourcer, supervision, finansieringsovertagelse.