T-celle-afledt interleukin-22 driver ekspressionen af CD155 af kræftceller for at undertrykke NK-cellefunktion og fremme metastase
Oct 10, 2023
RESUMÉ
Selvom T-celler kan udøve kraftig antitumorimmunitet, er en undergruppe af T-hjælper (Th)-celler, der producerer interleukin-22 (IL-22) i bryst- og lungetumorer, forbundet med triste patientresultater. Her undersøgte vi mekanismerne, hvorved disse T-celler bidrager til sygdom. I murine modeller af lunge- og brystkræft reducerede konstitutionel og T-cellespecifik deletion af Il22 metastaser uden at påvirke primær tumorvækst. Sletning af IL-22-receptoren på cancerceller reducerer metastasering i en grad svarende til den, der ses hos IL-22--mangelfulde mus. IL-22 inducerede høj ekspression af CD155, som bandt til den aktiverende receptor CD226 på NK-celler. Overdreven aktivering førte til nedsatte mængder af CD226 og funktionelt svækkede NK-celler, hvilket forhøjede den metastatiske byrde. IL-22-signalering var også forbundet med CD155-ekspression i humane datasæt og med dårlige patientresultater. Tilsammen afslører vores resultater et immunsuppressivt kredsløb aktiveret af T-celle-afledt IL-22, som fremmer lungemetastaser.

Fordele ved cistanche tubulosa-Antitumor
INTRODUKTION
Det vigtigste kendetegn ved neoplastisk progression og den primære årsag til cancerrelateret dødelighed er kræftcellers evne til at sprede sig til sekundære steder og danne metastaser.1,2 Dannelsen af metastaser kan forhindres ved immunovervågning, der involverer naturlig dræber (NK), cytotoksisk , og T-hjælper (Th) 1-celler.3,4 I modsætning hertil danner regulatoriske T-celler (Treg), cirkulerende monocytter og Th-celle-afledt IL-17A et immunsuppressivt mikromiljø, der muliggør immunudslip og fremmer metastaser. 4-6 Derfor er det afgørende at identificere signalkaskader, der definerer funktionen af pro- versus antitumorogene immunceller.7,8 Interleukin-22 (IL-22) er et cytokin produceret af Th17 og, hos mennesker, også af Th1-undergruppen, kendt for at fremme cancercellevækst, øge migration, beskytte mod apoptose, inducere epitel-til-mesenchymal overgang og opretholde stamness af maligne celler.9-13 Det fremmer også tidlig carcinogenese, virker på prækursorlæsioner eller umodne cancerstamceller.14-18 IL-22-producerende celler, hovedsageligt Th-celler, men også gamma delta (gd) T-celler, invariante naturlige dræber T-celler (iNKT) og medfødte lymfoide celler (ILC'er) ), er blevet påvist i primære cancerlæsioner.19-24 IL-22 udtrykkes på biologisk relevante niveauer i bryst-, tyktarms-, lunge-, mave- og hepatocellulært karcinom.9,11,12,25,26 I de fleste undersøgelser , dets udtryk er forbundet med en dårlig prognose, højere sygdomsstadie og hurtigere tumorprogression.13,22-24,27-29 IL-22 virker udelukkende gennem IL-22-receptoren (IL{{40 }}R) bestående af to underenheder, IL-22RA1 og IL-10RB.30,31 Virkningen af udskilt IL-22 moduleres af en inhibitor, IL{{47} } bindende protein (IL-22BP, IL-22RA2), en homolog af IL-22RA1, der hovedsageligt produceres af myeloide celler.32,33 Under steady-state betingelser, IL -22 er et væsentligt homøostatisk cytokin ved epitelbarrierer såsom tarm, lunge og hud.34,35 På disse steder fremmer IL-22 beskyttelse, regenerering og reparation for at opretholde barriereintegriteten,36, 37 og dets fravær forværrer inflammationsinduceret carcinogenese.13,38 Sammen fremhæver disse data de brede, kontekstafhængige funktioner af IL-22 i både fysiologiske og patologiske tilstande. Ved receptorbinding udløser IL-22 Janus-kinaserne Jak1 og Tyk2 til at phosphorylere STAT3, STAT1 eller STAT5, men IL-22 kan initiere andre downstream-veje, inklusive mitogen-aktiverede proteinkinaser (MAPK)-kaskaden eller PI3K-AktmTOR-signalering, afhængigt af den cellulære kontekst.13,36,39-44 Denne mangfoldighed af signalveje afspejles af de mange fysiologiske effekter, der er blevet forbundet med IL-22-signalering, inklusive dem, der er beskrevet ovenfor, samt beskyttelse mod genotoksisk skade og induktion af antibakterielle peptider, slim, pro- og antiinflammatoriske cytokiner og kemokiner.36,38,39,45,46 Kræftceller inducerer produktionen af IL-22 fra Th-celler i bryst- og lungecancerpatienter.12,47,48 NLRP3-inflammasomdrevet frigivelse af IL-1b inducerer IL-22-produktion fra T-celler i tumoren, og både IL-22+ Th-celler og en NLRP3-IL-1b-signatur kan findes i tumorprøver af bryst- og lungekræft.48,49 Her har vi sat os for at afgrænse en mekanisme, hvorved IL-22 fremmer udvikling af bryst- og lungekræft. Vi fandt ud af, at IL-22 fremmer spredning af metastaser til lungen, hvilket afslører et kredsløb, hvor IL-22 medierede immunsuppression i den metastatiske niche ved at fremme ekspressionen af CD155 på cancerceller, hvilket var forbundet med nedsat ekspression af CD226 på NK-celler og reduceret interferon-g (IFNg) produktion. Kliniske data indikerer, at aktivering af sådanne veje er forbundet med patientresultater.
RESULTATER
cistanche supplement fordele-øge immunitet
IL-22 påvirker spredte cancerceller i syngene musemodeller af lunge- og brystcarcinom
To understand the impact of the IL-22-IL-22R1 signaling axis on cancer progression, we analyzed syngeneic murine models of breast and lung carcinoma. As cancer patients mostly succumb to metastatic disease, we recapitulated this with phenotypically relevant models. We implanted either 4T1 breast cancer or Line-1 lung cancer cells subcutaneously (s.c.) in the right flank of wild-type mice (WT) and mice lacking IL-22 expression (Il22 / ) (Figure 1A). IL-22 did not impact the outgrowth of the primary tumors in either model (Figures 1B and 1C). Upon reaching pre-defined termination criteria (tumor >225 mm2 eller ulceration), var lungerne det vigtigste metastatiske sted i vores model med lejlighedsvise metastaser fundet andre steder (ikke vist). Il22/mus viste nedsat metastatisk udbredelse af Line-1- og 4T1-celler til lungen sammenlignet med vildtypedyr uafhængigt af den primære tumorstørrelse ved anvendelse af forskellige metoder til metastasedetektion (figur 1B, 1C og S1A). Vi har også observeret en lignende metastatisk fænotype i en ortotopisk model af brystkræft, hvor 4T1-celler blev implanteret i brystfedtpuden (figur S2B). Alle anvendte metoder til blindet makroskopisk tælling, klonogene assays eller histologi viste høj konsistens ved påvisning af lavere metastatisk byrde i Il22 / dyr (figur 1B, 1C og S1C). Dette implicerer IL-22s centrale rolle i den metastatiske proces. Dernæst tvang vi metastase gennem intravenøs cancercelleinjektion, som omgår behovet for vævsløsning og invasion (figur 1D). Intravenøse (iv) injektioner af begge cellelinjer afspejlede fænotypen i den subkutane model. Vi kunne faktisk bekræfte en lavere metastatisk belastning i Il22 / mus (figur 1E og 1F). Disse resultater indikerer en specifik rolle for IL-22 i spredte celler i cirkulation. For at skelne stammespecifikke effekter brugte vi en E0771 brystkræftmodel (figur 1G).50,51 Intravenøs injektion af E0771- GFP-celler afslørede en formindsket metastatisk byrde i Il22/dyr valideret ved flowcytometri (figur 1H og S1D). Tilsvarende observerede vi en lavere metastatisk byrde i leveren hos mus, når E0771-GFP-celler blev injiceret intrasplenisk (figur S1E). Hele venstre lunge af E0771-GFP-injicerede mus blev optisk clearet efter en iDISCO-protokol for at kvantificere metastaser med lysarkmikroskopi in situ (Figur 1I).52 Her udviste Il22/mus en reduceret tilbøjelighed til at udvikle metastaser , hvorimod størrelsen af de visualiserede metastaser ikke adskilte sig og ikke havde noget specifikt mønster for deres lokalisering (figur 1J). Sammenfattende virkede IL-22 på spredte kræftceller, hvilket muliggjorde bryst- og lungekræftmetastaser til lungen.
T-celler er den relevante kilde til IL-22 i den metastatiske niche i lungen
Vi har tidligere identificeret CD4+ T-celler som hovedkilden til IL-22 i primære humane lungetumorer og bronkoalveolære lavageprøver.12,47,48 For at afgrænse kilden til IL-22 i lungerne af vores modeller, injicerede vi intravenøst E0771-celler i Foxp3mRFP Il17aGFPIl22sgBFP-reporterdyr og kvantificerede IL-22+-celler ved hjælp af flowcytometri (figur 2A og S2A).53 Populationer blev defineret som CD{{14{1}5, CD{14{1}5, }} og dobbeltnegative (DN) (CD4, CD8) ab T-celler (CD3+ gdTCR NK1.1), gd T-celler (CD3+ gdTCR+ NK1.1) og CD{{ 26}} NK1.1+ og CD3 NK1.1+ celler (figur 2B og S2B). Vi observerede en stigning i andelen af CD4+, CD8+ T-celler og NK1.1+ celler, der producerede IL-22 i lungerne hos tumorinjicerede dyr ( 2C, S2C og S2D). Her udgjorde CD4+ og CD8+ T-celler størstedelen af IL-22-producerende celler i tumorbærende mus (figur 2C). Desuden identificerede vi, at sådanne CD4+ T-celler producerede IL-22 men ikke IL-17A (figur 2D). Disse celler havde lav CD44-ekspression, hvilket bekræfter deres hukommelsesfænotype i overensstemmelse med vores tidligere observationer (figur S2E).48 For yderligere at udforske disse fund på tværs af modeller brugte vi intracellulær farvning til at vurdere produktionen af IL-22 i linjen{ {56}} sc-model, som gav lignende resultater bortset fra en formindsket del af CD8+ T-celle IL-22-producenter (figur S2F-S2I). Vi kunne også identificere, at IL-22+-celler ikke co-udtrykte IFNg, hvilket adskiller muse-IL-22-producenter fra Th1-undergruppen (figur 2G).49 Desuden brugte vi konfokal mikroskopi på præcisionsskåret lungeskiver fra reporterdyr for at undersøge deres rumlige fordeling i lungerne på tumorinjicerede mus. Her kunne vi identificere, at sådanne IL-22- og IL-17A-producenter lokaliseres næsten udelukkende til de metastatiske foci (figur 2E). Som vist ved flowcytometri fandt vi ingen sammenhæng mellem IL-22 og IL-17En produktion fra reportercellerne i de metastatiske foci, hvilket indikerer, at IL-22 og IL-17 produceres faktisk af to forskellige cellulære undergrupper. Vi bekræftede også, at en stor del af IL-22-producerende celler er CD4+ T-celler (figur 2E). Da disse data indikerede en dominerende rolle for T-celler i IL-22-produktion, genererede vi en Il22floxCd4cre-mus med en betinget deletion af Il22 i alle modne T-celler (figur 2F). Når de blev udfordret med E0771-GFP-celler, havde Il22floxCd4cre-mus en reduceret tilbøjelighed til at udvikle metastaser i lungen, hvilket minder om fænotypen observeret i de globale Il22/dyr (figur 2F). Vi kunne dog også bekræfte, at cre-rekombinase under kontrol af CD4-promotoren fuldstændig afskaffede IL-22-produktion ikke kun i CD4+, men også i CD8+ T-celler isoleret fra milten af Il22floxCd4cre-mus, og derfor kunne denne model ikke bruges til at udpege en specifik kilde til IL-22 (figur S2J). For at bekræfte Th-cellernes rolle som den afgørende kilde til IL-22 i vores model, overførte vi vildtype- og Il22/CD{101}}-T-celler til Rag1/II22/-dyr, der efterfølgende modtog E{{ 104}} GFP-celler iv (figur 2G). Her kunne vi bekræfte, at IL-22 produktion af adoptivt overførte CD4+ T-celler er tilstrækkelig til at fremme lungemetastaser i vores model, men afskaffet ved brug af CD4+ T-celler isoleret fra II22/dyr (Figur 2G). Det er vigtigt, at forskelle i metastase blev påvirket af T-celle-engraftment ved overførsel (figur S2K). Som konklusion identificerede vi Th-celler som en tilstrækkelig kilde til IL-22, der driver metastaser i lungerne hos tumorbærende mus, og vi forsøgte derefter at identificere den relevante målcelle.
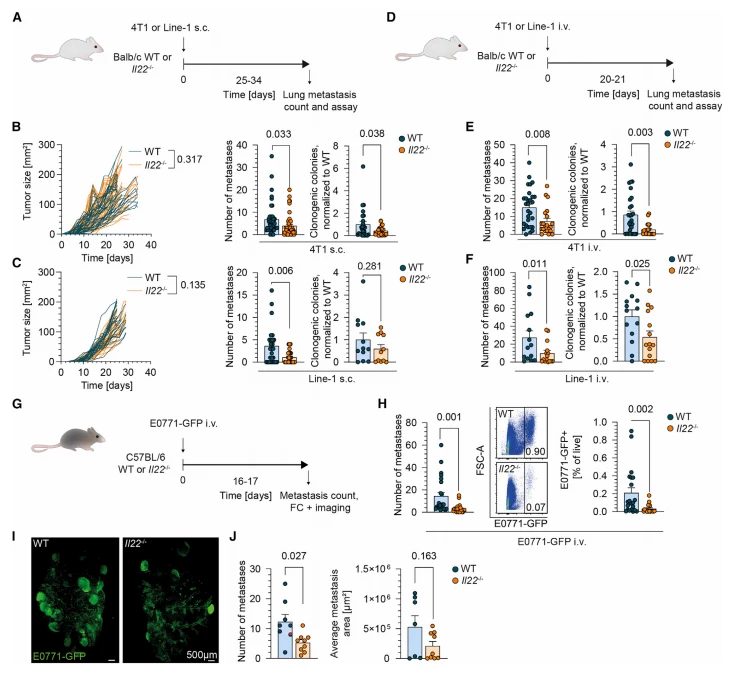
Figur 1. IL-22-knockout reducerer antallet af lungemetastaser, men påvirker ikke tumorvækst i syngene musemodeller af lunge- og brystcarcinom
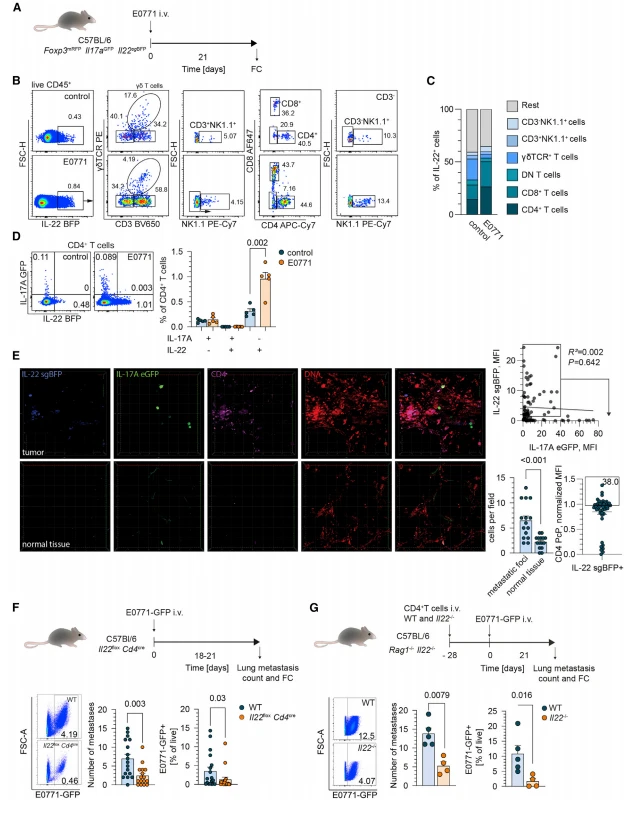
Figur 2. T-celler er den primære kilde til IL-22 i lungerne hos tumorbærende mus
Ekspressionen af IL-22RA1 på tumorceller er uundværlig for dannelsen af metastaser
IL-22RA1-ekspression er begrænset til ikke-hæmatopoietiske celler og fungerer som en begrænsende faktor for IL-22-signalering. For at undersøge dens indflydelse på den metastatiske fænotype genererede vi en stabil Il22ra1-deletion i 4T1- og Line-1-celler (figur 3A). I overensstemmelse med vores tidligere resultater var tumorvækst af 4T1 Il22ra1-celler stort set upåvirket sammenlignet med 4T1-kontrolceller (figur 3B). Mus, der blev injiceret med 4T1 Il22ra1-celler sc eller iv, havde imidlertid færre makroskopiske og klonogene metastaser i lungen sammenlignet med kontrol 4T1-celler (figur 3B og 3C). For at bekræfte, at denne effekt ikke er klonafhængig, genererede og analyserede vi tre Line-1 Il22ra1-kloner og testede dem mod tre kontrolkloner, som gav lignende resultater (figur 3D og 3E). Dette bekræfter, at IL-22RA1-udtrykkende cancerceller er det relevante mål for IL-22 i drivende lungemetastaser. For at udelukke metodologiens off-target-effekter brugte vi IL-22BP til at hæmme IL-22-signalering. Vi etablerede 4T1- og Line-1-cellelinjer, der konstitutivt udskilte IL-22BP (Il22ra2+) (figur S3A). Når de blev injiceret sc, voksede Line-1 Il22ra2+-celler sammenligneligt med kontrollen på implantationsstedet, som tidligere set i Il22ra1-modellerne og Il22/musene, selvom 4T1 Il22ra2+-celler voksede langsommere (Figur S3B). Her havde 4T1 Il22ra2+-celler et stort set reduceret antal metastaser, når de blev injiceret sc (figur S3B og S3C). På trods af større variabilitet dannede Line-1 Il22ra2+-cellerne også færre metastaser, når de blev injiceret sc eller iv (figur S3D og S3E). Således efterlignede IL-22-neutralisering gennem IL-22BP stort set fænotypen observeret med Il22ra1-celler og Il22/mus, hvilket bekræfter relevansen af cytokinet for den metastatiske proces.

cistanche supplement fordele-øge immunitet
IL-22 kontrollerer udvæksten af tumorceller i det tidlige stadie af metastatisk engraftment
To determine the role of IL-22 signaling during the dissemination process, we analyzed the kinetics of metastatic seeding in our models. For this, we injected 4T1-GFP cells i.v. and analyzed lungs at 12 and 48 h after injection (Figure S4A). We used confocal microscopy to quantify the numbers of GFP+ colonies (defined as cell clusters of >100 mm) og individuelle celler pr. mm2 lungevæv (figur S4B). Vi kunne ikke detektere forskelle 12 timer efter injektion, hvilket indikerer, at podningen muligvis ikke er væsentligt påvirket af IL-22 (figur S4C og S4D). Men på tidspunktet for 48-h faldt antallet af GFP+-celler og kolonier i lungerne hos Il22/mus (figur S4C og S4D). Dette antydede en rolle for IL-22 i forbindelse med tidlig metastasering i lungerne. For at vurdere proliferationshastigheden co-injicerede vi mus med 5-ethynyl-20 -deoxyuridin (EdU) 4 timer før undersøgelse 12, 24, 48 timer og 7 dage efter tumorinjektion (Figur S4E) . I lighed med mikroskopisk tælling opdagede vi ikke forskelle i antallet af GFP+-celler tidligere end 48 timer efter injektion (figur S4F-S4G). I modsætning hertil kunne vi opdage forskelle i EdU-inkorporering, hvilket indikerer en højere brøkdel af delende celler kun på dag 7 efter injektion (figur S4G). Således begrunder vi, at forskelle i lungetumorbyrde påvirket af IL -22 observeret så tidligt som 48 timer er medieret af en mekanisme, der er uafhængig af proliferation.
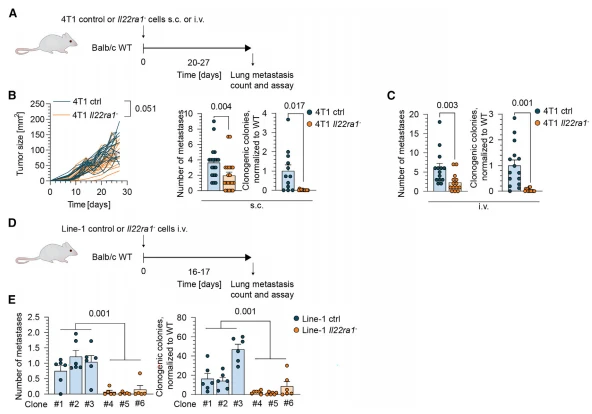
Figur 3. IL-22RA1-ekspression på tumorceller er uundværlig for metastasedannelse
IL-22 regulerer ekspressionen af CD155 på tumorceller og fremmer derved metastasering
Baseret på vores resultater om, at IL-22 virker på IL-22ra1+-kræftceller for at fremme metastaser, udførte vi bulk-RNA-sekventering af 4T1-celler behandlet med IL-22 for yderligere at afgrænse den underliggende mekanisme (GEO: GSE202314) (Figur 4A). Vi opdagede 147 gener, der var differentielt reguleret. Af disse blev ekspressionen af 133 gener øget, og 14 faldt ved IL-22-behandling (figur 4B og S5A). Vi validerede Pvr (poliovirus-receptor, Pvr) som et af de mest signifikant øgede mål ved hjælp af qPCR (figur S5B). Dette er bemærkelsesværdigt, fordi CD155, produktet af Pvr, er overudtrykt i forskellige kræftformer og besidder tumorfremmende egenskaber, herunder metastase.54-56 For at bekræfte vores resultater evaluerede vi ekspressionen af CD155 i IL-22-stimuleret 4T1, Linje-1- og E0771-celler ved flowcytometri (figur 4C). Vi opdagede en stigning i ekspressionen af CD155 i alle cellelinjer i løbet af 72 timer (figur 4D og 4E), men denne effekt var fraværende i celler, der manglede IL-22RA1 (figur S5C). Dernæst evaluerede vi virkningen af IL-22 på CD155-ekspression i E0771-GFP-celler fra lungerne af tumorbærende mus (figur 4F). Her kunne vi bekræfte, at celler implanteret i Il22/mus havde en lavere ekspression af CD155, hvilket korrelerede med en mindre fraktion af E0771-GFP-celler påvist ved flowcytometri (figur 4G og 4H). For at verificere CD155's rolle i metastase etablerede vi Pvr Line -1 og 4T1 cellelinjer (figur 4I, S5D og S5G). Selvom dette havde ringe effekt på deres evne til at vokse subkutant (figur S5E og S5F), afskaffede det evnen til at danne metastaser i lungen (figur 4J og S5H). Vi kunne vende denne proces ved konstitutiv CD155-ekspression i Pvr-celler uafhængigt af IL-22--induceret regulering (Pvr+).
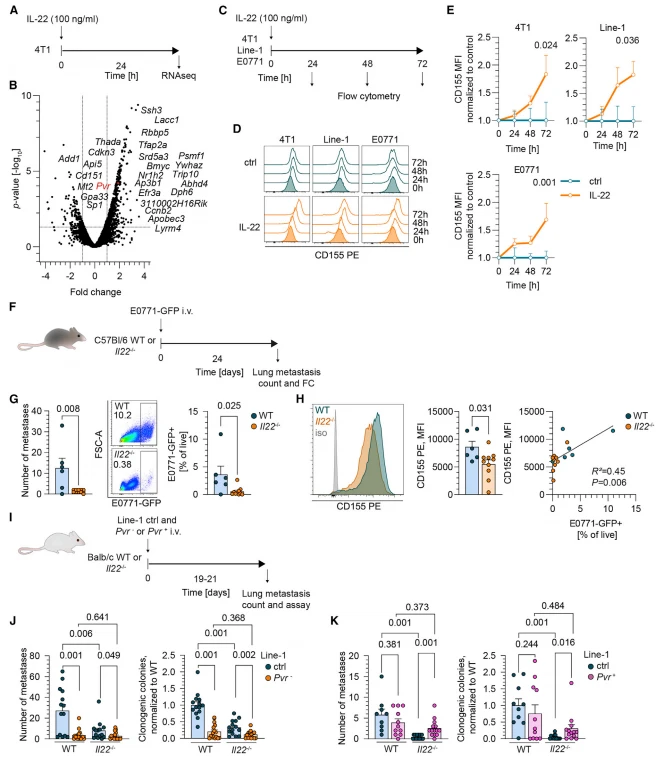
Figur 4. IL-22-signalering øger ekspressionen af CD155 på overfladen af tumorceller og giver resistens over for metastasekontrol
I denne indstilling kunne vi inducere metastaser i lungerne af Il22 / mus, hvilket fremhæver forbindelsen mellem disse to molekyler og deres rolle som mediatorer af den metastatiske proces (figur 4K og S5I).
CD155 på tumorceller er forbundet med nedsat ekspression af CD226 på NK-celler og reduceret IFNg-produktion
CD155 spiller en iboende rolle i spredning og adhæsion i cancerceller, bl.a.54-57. Vi påviste ikke mangler i proliferationen af Line-1 Pvr-celler in vitro (data ikke vist). Det er vigtigt, at CD155 har en celleekstrinsisk pro-metastatisk rolle ved at binde til de immunmodulerende receptorer CD96, CD226 eller TIGIT på overfladen af NK- og T-celler. antitumorreaktioner i lungerne hos mus, der indeholder 4T1-luciferase+-celler (4T1-Luc) (figur 5A). Vi bekræftede ved hjælp af et in vivo billeddannelsessystem (IVIS), at vildtype- og Il22/mus havde lignende udsåning af tumorceller på dag 5 efter injektion, og forskellene i tumorbyrde steg i løbet af to uger (figur 5B og 5C) . Faktisk viste defekten af IFNg-produktion af NK-celler, men ikke andre celletyper, tabet af humorale effektormekanismer (figur 5D, 5E og S6A) og korrelerede med højere tumorbyrde (figur S6B). Denne effekt blev konsekvent fundet i Line-1 sc-modellen (figur S6C–S6E). Undersøgt ved chipcytometri viste 60 prøver fra 4T1-lungemetastasebærende mus øget ekspression af CD155 i de metastatiske foci i WT, men ikke i Il22/dyr (figur 5F og S6F). Vi fandt højere infiltration af NK-celler i de metastatiske foci af Il22 / men ikke WT-dyr, hvilket tyder på højere aktivering og bekræfter afhængigheden af NK-celler som antitumor-effektorceller (figur 5F). CD226, men ikke TIGIT eller CD96, blev differentielt udtrykt af NK-celler og i mindre grad af CD8+ T-celler i lungerne af vildtype og Il22/dyr (figur 5G og S6G-S6H). CD226 er en co-receptor essentiel for aktiveringen af effektorfunktioner af NK- og CD8-T-celler. Derfor satte vi os for at udforske dens patofysiologiske relevans i vores model.61–64

cistanche tubulosa-forbedrer immunsystemet
Blokering af CD226 ophæver den anti-metastatiske fænotype af IL--22-mangelfulde dyr
Overdreven CD155-medieret signalering, der er til stede i tumormikromiljøet, kan inducere internalisering og nedbrydning af CD226 i effektorceller.61,63 For at afgrænse rollen af overdreven CD155-ekspression på CD226 og efterfølgende antitumorrespons, injicerede vi 4T1-kontrol og Pvr+-celler iv i Il22/-mus, og to grupper modtog også anti-CD226-blokerende antistof (480.1) (figur 6A). Både Pvr+-celler og CD226-blokade kunne på samme måde fremme lungemetastase i Il22/mus, og disse virkninger kom ikke i synergi (figur 6B). I lighed med vores tidligere observationer i vildtypedyr var dette tilstrækkeligt til at inhibere IFNg-produktion af NK-celler (figur 6C). Endelig opdagede vi et fald i CD226-ekspression på NK-celler i Pvr+-injicerede mus sammenlignet med kontrolceller. Dette korrelerede med den nedsatte kapacitet af disse NK-celler til at producere IFNg (figur 6D). Desuden undersøgte vi potentialet for agonistisk TIGIT-antistof (IG9) til at hæmme NK-celleaktivering i Il22/dyr og af CD96-blokade (3.3) for at forhindre inhibering af NK-cellefunktion (figur 6E). Hverken TIGIT-agonisten eller CD96-antagonisten ændrede antallet af metastaser sammenlignet med Il22/dyr, der modtog kontrol- eller Pvr+ 4T1-celler, henholdsvis (figur 6F). Når aktiveret, kunne TIGIT hæmme IFNg-produktion fra CD8+ T, men ikke NK-celler (figur 6G). Således udløser en IL-22- CD155-akse nedsat ekspression af CD226 i NK-celler og gør dem inerte i tumormikromiljøet.
CD155-ekspression komplementerer IL-22-gensignaturen hos bryst- og lungekræftpatienter
Til sidst vurderede vi den kliniske relevans af CD155 i sammenhæng med IL-22-IL-22RA1-aksen. CD155-ekspression alene er forbundet med ugunstig prognose i en række forskellige cancerenheder.54 Vi analyserede RNA-sekventeringsdata fra cancergenomatlas (TCGA) lungeadenokarcinom (TCGA: LUAD, n=504) og HER2- positive patientprøver fra det invasive brystcarcinom (TCGA: BRCA, n=110) datasæt. Vi fokuserede på nøgle IL-22-relaterede gener: IL22RA1, IL22RA2, IL10RB og PVR. For at stratificere patientkohorter brugte vi agglomerative clustering, en uovervåget klyngemetode, hvilket resulterede i tre store klynger (figur 7A og 7B). Dette afslørede karakteristiske genekspressionsmønstre: klynge 0 (IL22RA1hi, IL22RA2lo, IL10RBmed, PVRhi), klynge 1 (IL22RA1lo, IL22RA2hi, IL10RBhi, PVRlo) og klynge 2 (IL22RA1lo, IL22RA2lo, IL10RBlo, PVRmed) (figur 7C). Disse klynger var jævnt fordelt i disse to kohorter (figur 7D). Patienter i klynge 0 og LUAD-datasæt klynge 2 havde dårligere overlevelse end patienter i klynge 1 (figur 7E). Overlevelse af klynger 1 og 2 var ikke forskellige i begge kohorter (figur 7E). Yderligere beregnede vi begrænsede gennemsnitlige overlevelsestider (RMST) for klynger 0 og 1 for at kvantificere forskellen i forventet overlevelsestid indtil fem års opfølgning, hvilket resulterede i 361,18 dage for LUAD og 93,23 dage for BRCA (figur 7F). Klynge 0 og 1 havde forskelle i hyppigheden af patologiske sygdomsstadier i dem i LUAD, men ikke i BRCA-kohorten (figur 7G). Det er vigtigt, at sådanne overlevelsesforskelle mellem klynger (IL22RA1hiPVRhi) og 1 (IL22RA1loPVRlo) hovedsageligt stammer fra patienter diagnosticeret i de tidlige (I og II), men ikke i fremskredne stadier af sygdommen (III og IV) (Figur S7A). For at vurdere virkningen af hvert gen på overlevelse, brugte vi Cox's proportional hazard model. Både IL22RA1 (hazard ratio [HR]=1.23) og PVR (HR=1.28) påvirker overlevelsen, hvorimod IL22RA2 og IL10RB ikke ændrede faren i LUAD-kohorten (figur S7B). Desuden var det kun CD226 (p=0.06), men ikke TIGIT eller CD96, der havde en tendens til at påvirke overlevelsen i overensstemmelse med vores resultater i prækliniske modeller (figur S7B). Vi brugte CIBERSORTx-dekonvolutionsalgoritmen på LUAD-kohorten til at vurdere, om genekspressionsmønstre i vores klynger har en indvirkning på immuncelleinfiltration hos patienter.65 Interessant nok er der en stigning i CIBERSORTx-enheder for aktiverede NK-celler i klynge 1 sammenlignet med klynger 0 og 2 i LUAD-patienter, hvorimod der ikke var nogen forskelle i hvilende NK-celler eller aktiverede CD4+-hukommelses-T-celler (figur S7C) med en lignende tendens i BRCA-kohorten (figur S7D). Tilsammen viser disse resultater fra kliniske kohorter relevansen af en regulatorisk forbindelse mellem T-celle-afledt IL-22 og CD155.
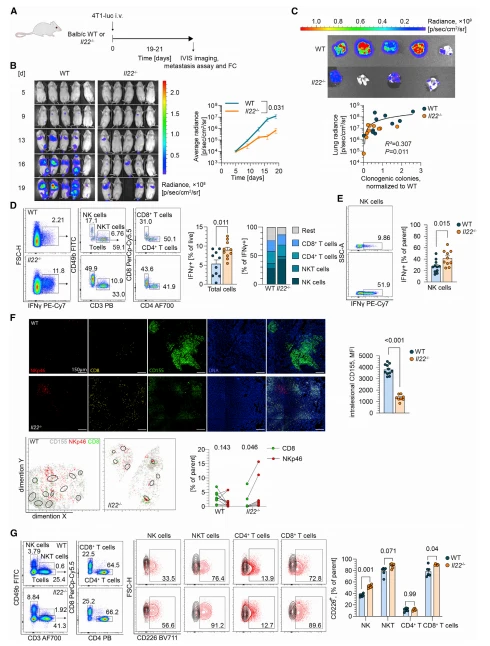
Figur 5. CD226-ekspression er højere på NK-celler i Il22–/– mus
DISKUSSION
I denne undersøgelse opdagede vi en mekanisme, hvorved T-celler producerer IL-22 for at fremme lungemetastaser i musemodeller af lunge- og brystkræft. Mekanisk producerer T-celler ved de metastatiske foci i lungen, overvejende CD4+, IL-22, der signalerer direkte gennem sin receptor udtrykt i cancerceller, hvilket fremmer ekspression af det pro-metastatiske molekyle CD155.{{ 5}},58,59 På trods af den velundersøgte pan-cancer-ekspression af CD155 og dens iboende og ydre roller i cancerprogression54 forbliver den vej, der er ansvarlig for CD155-regulering i maligne celler, uhåndgribelig.66-68 Vi påviste, at IL{{ 15}} øget CD155-ekspression i lunge- og brystcancercellelinjer in vitro og in vivo, hvorimod dets konstitutive ekspression muliggjorde metastaser i Il22/mus sammenlignet med kontrolceller og mangelfulde celler. Øget ekspression af CD155 i tumorlungemikromiljøet førte til en reduktion af co-stimulerende molekyle CD226 på NK-celler, hvilket mindskede deres lokalisering til metastaser og IFNg-produktion, hvilket korrelerede med højere tumorbyrde. I vores tidligere undersøgelser påviste vi en akkumulering af IL-22-producerende T-celler i ikke-småcellet lungekarcinom (NSCLC)-patienttumorprøver.12,48 Vi har påvist, at cancerceller udløser NLRP3- afhængig sekretion af IL-1b, der inducerer en sådan IL-22-produktion hovedsageligt fra Th-celler.18 Værd at bemærke er, at hos mennesker, på grund af forskellene i Th-cellens cytokinprofiler, IL{{ 31}} induceres også i Th1-celler. Det er tænkeligt, at dette kan forringe antitumor-immunresponset. Det er vigtigt, at sådanne Th1-varianter delvist kan forklare cancerhyperprogression efter T-celleaktivering efter kontrolpunktblokade.69 I overensstemmelse med vores tidligere observationer bekræftede vi akkumuleringen af IL-22-producerende CD4+ og CD{{38} } T-celler, men også NK1.1+-celler, i den metastatiske niche i lungen hos tumorinjicerede dyr. Det er vigtigt at bemærke, at vi observerede stammespecifikke forskelle i akkumuleringen af sådanne IL-22-producerende CD8+ T-celler på tværs af vores modeller. At afskaffe IL-22-produktionen i totale modne T-celler var imidlertid tilstrækkeligt til at rekapitulere den effekt, vi observerede hos IL-22--mangelfulde dyr.70 Også adoptiv overførsel af CD4+ T-celler til Rag / II22 / mus var tilstrækkeligt til at inducere lungemetastaser, hvilket pegede på Th-cellernes vigtigste rolle som en kilde til IL-22. Omvendt tyder vores tidligere resultater på, at trods en akkumulering af CD8+ T-celler i tumorprøver, er deres bidrag til IL-22-puljen mindre.48 Under alle omstændigheder er karakteriseringen af en sådan CD{{53 }} IL-22-producerende T-celler er afgørende for omhyggeligt at evaluere deres pro- eller antitumoregenskaber, efterhånden som nye data om denne subpopulation dukker op.71,72 Desuden opvejer NK- og NKT-cellernes primære rolle i tumorkontrol deres potentielt bidrag til metastasedannelse gennem IL-22, som ses i et Rag / II22 / adoptiv overførselseksperiment med dyr, der er blottet for modne T-celler, men som har funktionelle NK-celler.37 Denne hypotese understøttes yderligere af vores fund i den metastatiske foci, hvor NK-celler blev fundet mere rigeligt end cytotoksiske T-celler, hvilket fremhæver NK-celler som væsentlige spillere i tumorkontrol i fravær af IL-22. Det er vigtigt at bemærke, at vi fokuserede på IL-22-producenter ved metastatiske foci i lungen, men ikke overvejede deres oprindelse, klonalitet eller deres fordeling i blod eller lymfoide organer. Desuden fremmer forskellige kilder til IL-22 tumorprogression på en kontekstafhængig måde medieret af den pleiotrope virkning af dette cytokin. På denne måde kan lignende IL-22-producerende celler i forskellige kompartmenter (lunge vs. milt vs. lymfeknude) forskelligt påvirke protumorale fænotyper eller ikke have nogen funktion afhængigt af konteksten, hvilket skal undersøges nærmere. Kræftundersøgelser rapporterer gentagne gange, at IL-22 påvirker udviklingen og væksten af primære tumorer og i sidste ende neoplastisk progression.26,73-76 Denne opfattelse er hovedsageligt begrundet i evnen til at fremme migration, invasion og stammen af cancerceller in vitro og dermed fremme metastasedannelse.76,77 Det er vigtigt, at ablation af IL-22 kan lindre det immunsuppressive mikromiljø i en Kras-mutant model af lungekarcinom.14 I det aktuelle studie viste vi, at den øgede metastatiske byrde var en direkte effekt af IL-22 på disseminerede IL-22RA1+-tumorceller, hvilket resulterede i øget koloniudvækst. Det er vigtigt, at vores data ikke formelt udelukker en indvirkning på ikke-tumorceller. Som sådan er indflydelsen af IL-22 på tumorcellespredning gennem den iboende virkning af endogent udtrykt IL-22R udførligt fremhævet af Giannou et al.78
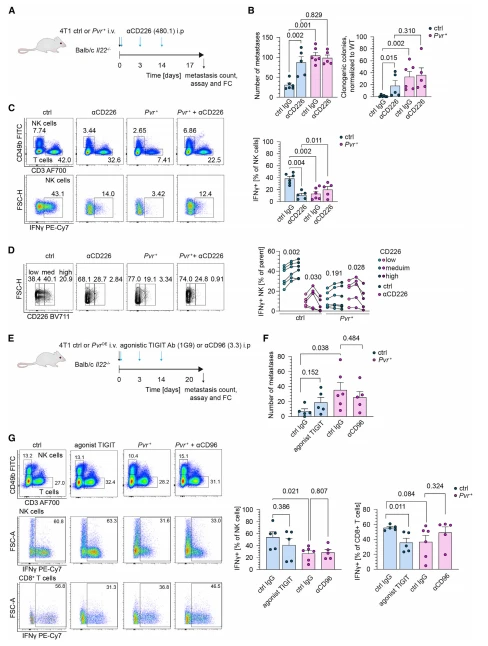
Figur 6. CD226-signalering er uundværlig for IFNg-produktion fra NK-celler
Vi påviste, at Pvr er et af generne med øget ekspression på cancerceller ved IL-22-behandling. I denne sammenhæng dannede CD155-mangelfulde celler få metastaser, både i vildtype og Il22/mus, og, hvad der er vigtigt, gav genindførelsen af CD155 os mulighed for at rekonstituere den metastatiske fænotype. CD155's iboende rolle i cancerceller er blevet grundigt undersøgt og er kendt for at påvirke udsåning, tumorcelleproliferation og migration.56,57 Pvr-celler viste imidlertid ikke hæmmet spredning eller migration i vores hænder og udsåning af tumorceller var upåvirket i Il22 / mus. Oprindeligt identificeret på antigen-præsenterende celler, fungerer CD155 som en ydre promotor for tumorprogression, der undertrykker NK- og T-cellefunktion ved at binde til CD96 og TIGIT på deres overflade og inducerer internalisering og nedregulering af CD226.56,61-64,79-85Due til sin immunsuppressive funktion udøver CD155 i cancer- og værtsceller pro-metastatiske egenskaber og foreslås som et mål for checkpoint-hæmningsblokade.61, 86 NK-celler modtager et co-stimulerende signal fra antigen-præsenterende celler via CD226. 87 Overdreven stimulering af CD226 i tumormikromiljøet fører imidlertid til internalisering og nedbrydning.63 Dette modvirkes typisk af CD96 og TIGIT, som binder CD155 med en højere affinitet.58 Interessant nok er 4T1-celler kendt for at inducere CD226-nedregulering ved tumorinfiltrering. lymfocytter og undertrykker IFNg-produktion.88 Her viste vi, at IL-22-mangel bevarede CD226-ekspression på NK- og CD8+-T-celler. Imidlertid havde kun NK-celler dramatisk højere IFNg-produktionsevner og var omvendt korreleret med metastatisk belastning. Interessant nok hæmmede aktivering af TIGIT-signalering i vores undersøgelse IFNg-produktion fra CD8+ T, men ikke NK-celler og var ikke tilstrækkelig til at øge den metastatiske byrde. Tilsvarende var en anden receptor for CD155, CD96, hverken differentielt reguleret i Il22/mus, og inhibering deraf forhindrede heller ikke metastase, hvilket indikerer, at CD155 ikke undertrykker NK-celler via CD96 i vores model. Dette fremhæver celletype-specifik regulering af antitumorresponser af CD155 og dets forskellige bindingspartnere.

cistanche supplement fordele-hvordan man styrker immunsystemet
Klik her for at se produkter fra Cistanche Enhance Immunity
【Spørg om mere】 E-mail:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
Indvirkningen af CD155 på prognosen og dens rolle i patogenesen af lunge-, bryst-, tyktarms- og andre typer cancer er fastslået.79-85 Der er omfattende beviser på den prognostiske relevans af IL-22 og dets relaterede gener i forskellige kræftenheder.10,21,27,75,89-91 Nogle undersøgelser rapporterer imidlertid ingen indflydelse af IL-22-ekspression på overlevelse.12 Selvom disse uoverensstemmelser kan skyldes heterogeniteten i patientpopulationer, prøveudtagning og rapportering af problemer, fokuserer mange af disse undersøgelser på et enkelt gen relateret til IL-22-signalering. Her brugte vi agglomerativ clustering til at skelne ekspressionsmønstre af IL22RA1, IL22RA2, IL10RB og PVR i LUAD- og BRCA-kohorter i TCGA og tilknytte dem til de kliniske data. Her identificerede vi tre ekspressionsmønstre af disse gener: mønster 0 (IL22RA1hi, IL22RA2lo, PVRhi), mønster 1 (IL22RA1lo, IL22RA2hi, PVRlo) og mønster 2 (IL22RA1lo, IL22RA2lo, PVRmed). Vi identificerede, at høj ekspression af IL22RA1 faldt sammen med en høj ekspression af PVR, hvilket også oversattes til dårlige samlede overlevelsesresultater, især hos patienter diagnosticeret med tidlige (I og II), men ikke fremskredne (III og IV), patologiske stadier, hvilket fremhæver den fasespecifikke rolle af denne mekanisme. Omvendt var høj ekspression af IL22RA2, også kendt som IL-22BP, korreleret med lavere PVR-ekspression og bedre overlevelse.18,34 Det tredje mønster svarede til helt lav ekspression og repræsenterede immunologisk kolde tumorer.92 Langs disse linjer , CIBERSORTx-dekonvolution indikerede, at klynge 1 karakteriseret ved høj IL22RA2-ekspression har en gensignatur for aktiverede, men ikke hvilende, NK-celler sammenlignet med andre klynger. CD226-ekspression er vist at stratificere patienter med henblik på udfald i adskillige NSCLC-kliniske forsøg.93 Men på grund af den dobbelte måde af præ- og post-translationel regulering af CD226 afspejles ekspression ikke altid i mRNA-sekventeringsdata.94 Derfor er undersøgelser, der fokuserer på om den post-translationelle regulering af CD226 evaluere dets ekspression i kliniske prøver ved hjælp af antistoffarvning.63 Ikke desto mindre, når man forhørte TCGA-datasættet vedrørende forholdet mellem CD155-bindingspartnere og overlevelse, var det kun CD226, der havde en tendens til at forbedre prognosen (log (HR) {{57 }}.24, p=0.06), hvorimod TIGIT og CD96 ikke viste nogen korrelation med overlevelse. Det er vigtigt, at tumorceller, der er konstrueret til at udskille IL-22BP, dannede færre metastaser, hvilket fremhæver potentialet af IL-22-vejen for målrettet terapeutisk intervention. Dette kunne modvirke tumor CD155-overekspression, da direkte målretning forbliver udfordrende på grund af et komplekst netværk af co-receptorer. Det skal yderligere bemærkes, at de langsigtede virkninger af IL-22-neutralisering på metastaser er ukendte, men de kan have en direkte indvirkning på den terapeutiske overvejelse af T-celler eller give begrundelsen for IL-22-neutralisering ved hjælp af antistoffer med en gavnlig sikkerhedsprofil, såsom Fezakinumab (forsøg NCT01941537) eller konstrueret IL-22 med strukturbaseret design.39,95 Sammenfattende identificerede vi IL-22-induceret CD155-overekspression på tumorcellerne som en mekanisme, der gavner metastatisk udvækst. Denne væsentlige rolle i prognose understregede potentialet af IL-22 som et terapeutisk mål i cancer. Indtil videre er neutraliseringen af IL-22 primært foreslået som en strategi til behandling af autoimmune sygdomme.31,49 Vores data om IL-22BP som neutralisator af IL-22, som fænokopierede global IL-22-mangel, understøttede det terapeutiske potentiale for at målrette IL-22-IL-22R1-aksen og bør udforskes yderligere i prækliniske og kliniske undersøgelser.
REFERENCER
1. Hanahan, D. og Weinberg, RA (2011). Kræftens kendetegn: den næste generation. Celle 144, 646-674. https://doi.org/10.1016/j.cell.2011. 02.013.
2. Massague', J., og Obenauf, AC (2016). Metastatisk kolonisering ved cirkulerende tumorceller. Nature 529, 298-306. https://doi.org/10.1038/ nature17038.
3. Renner, P., Rovira, J., Klein, C., Schlitt, HJ, Geissler, EK, og Kroemer, A. (2014). KLRG1(+) naturlige dræberceller beskytter mod lungemetastatisk sygdom ved immunovervågning. OncoImmunology 3, e28328. https://doi.org/10.4161/onci.28328.
4. Mohme, M., Riethdorf, S. og Pantel, K. (2017). Cirkulerende og spredte tumorceller - mekanismer for immunovervågning og flugt. Nat. Rev. Clin. Oncol. 14, 155-167. https://doi.org/10.1038/nrclinonc. 2016.144.
5. Briukhovetska, D., Do¨rr, J., Endres, S., Libby, P., Dinarello, CA, og Kobold, S. (2021). Interleukiner i cancer: fra biologi til terapi. Nat. Rev. Cancer 21, 481-499. https://doi.org/10.1038/s41568-021-00363-z.
6. Kitamura, T., Qian, BZ og Pollard, JW (2015). Immuncellefremme af metastaser. Nat. Rev. Immunol. 15, 73–86. https://doi.org/10.1038/ nri3789.
7. Galon, J. og Bruni, D. (2020). Tumorimmunologi og tumorudvikling: sammenflettede historier. Immunitet 52, 55-81. https://doi.org/10.1016/j.immuni.2019.12.018.
8. Page` s, F., Mlecnik, B., Marliot, F., Bindea, G., Ou, FS, Bifulco, C., Lugli, A., Zlobec, I., Rau, TT, Berger, MD et al. (2018). International validering af konsensus Immunoscore for klassificering af tyktarmskræft: en prognostisk og nøjagtighedsundersøgelse. Lancet 391, 2128-2139. https://doi. org/10.1016/S0140-6736(18)30789-X.
9. Rui, J., Chunming, Z., Binbin, G., Na, S., Shengxi, W., og Wei, S. (2017). IL-22 fremmer udviklingen af brystkræft ved at regulere HOXB-AS5. Oncotarget 8, 103601–103612. https://doi.org/10.18632/ oncotarget.22063.
10. Kryczek, I., Lin, Y., Nagarsheth, N., Peng, D., Zhao, L., Zhao, E., Vatan, L., Szeliga, W., Dou, Y., Owens, S. ., et al. (2014). IL-22(+)CD4(+) T-celler fremmer kolorektal cancer-stamhed via STAT3-transskriptionsfaktoraktivering og induktion af methyltransferasen DOT1L. Immunity 40, 772-784. https://doi.org/10.1016/j.immuni.2014.03.010.
11. Jiang, R., Tan, Z., Deng, L., Chen, Y., Xia, Y., Gao, Y., Wang, X., og Sun, B. (2011). Interleukin-22 fremmer humant hepatocellulært karcinom ved aktivering af STAT3. Hepatology 54, 900-909. https://doi.org/10.1002/ hep.24486.
12. Kobold, S., Vo¨lk, S., Clauditz, T., K€ upper, NJ, Minner, S., Tufman, A., D€ uwell, P., Lindner, M., Koch, I. ., Heidegger, S., et al. (2013). Interleukin-22 udtrykkes ofte i små- og storcellet lungekræft og fremmer vækst i kemoterapi-resistente cancerceller. J. Thorac. Oncol. 8, 1032-1042. https://doi.org/10.1097/JTO.0b013e31829923c8.
13. Hernandez, P., Gronke, K. og Diefenbach, A. (2018). En fangst-22: interleukin-22 og kræft. Eur. J. Immunol. 48, 15-31. https://doi.org/10. 1002/eji.201747183.
14. Khosravi, N., Caetano, MS, Cumpian, AM, Unver, N., De la Garza Ramos, C., Noble, O., Daliri, S., Hernandez, BJ, Gutierrez, BA, Evans, SE, et al. (2018). IL22 fremmer Kras-mutant lungekræft ved induktion af en protumor-immunrespons og beskyttelse af stammeegenskaber. Cancer Immunol. Res. 6, 788-797. https://doi.org/10.1158/ 2326-6066.CIR-17-0655. 15. Li, H., Mou, Q., Li, P., Yang, Z., Wang, Z., Niu, J., Liu, Y., Sun, Z., Lv, S., Zhang, B. ., og Yin, C. (2019). MiR-486-5p hæmmer IL-22-induceret epitel-mesenkymal overgang af brystkræftceller ved at undertrykke Dock1. J. Cancer 10, 4695-4706. https://doi.org/10.7150/jca.30596.
16. Kim, K., Kim, G., Kim, JY, Yun, HJ, Lim, SC, og Choi, HS (2014). Interleukin-22 fremmer epitelcelletransformation og brysttumorgenese via MAP3K8-aktivering. Carcinogenese 35, 1352-1361. https:// doi.org/10.1093/carcin/bgu044.
17. Katara, GK, Kulshrestha, A., Schneiderman, S., Riehl, V., Ibrahim, S. og Beaman, KD (2020). Interleukin-22 fremmer udviklingen af ondartede læsioner i en musemodel af spontan brystkræft. Mol. Oncol. 14, 211-224. https://doi.org/10.1002/1878-0261.12598.
18. Huber, S., Gagliani, N., Zenewicz, LA, Huber, FJ, Bosurgi, L., Hu, B., Hedl, M., Zhang, W., O'Connor, W., Jr., Murphy, AJ, et al. (2012). IL-22BP reguleres af inflammasomet og modulerer tumordannelsen i tarmen. Nature 491, 259–263. https://doi.org/10.1038/ nature11535.
19. Perez, LG, Kempski, J., McGee, HM, Pelzcar, P., Agalioti, T., Giannou, A., Konczalla, L., Brockmann, L., Wahib, R., Xu, H., et al. (2020). TGFbeta-signalering i Th17-celler fremmer IL-22-produktion og colitis-associeret tyktarmskræft. Nat. Commun. 11, 2608. https://doi.org/10.1038/ s41467-020-16363-w.
20. Meyer, A., Stark, M., Karstens, JH, Christiansen, H. og Bruns, F. (2012). Langerhans celle histiocytose af kraniebasen: er lavdosis strålebehandling effektiv? Sagsrepræsentant Oncol. Med. 2012, 789640. https:// doi.org/10.1155/2012/789640.
21. Zhuang, Y., Peng, LS, Zhao, YL, Shi, Y., Mao, XH, Guo, G., Chen, W., Liu, XF, Zhang, JY, Liu, T., et al. (2012). Øget intratumoral IL-22-producerende CD4(+) T-celler og Th22-celler korrelerer med gastrisk cancerprogression og forudsiger dårlig patientoverlevelse. Cancer Immunol. Immunother. 61, 1965-1975. https://doi.org/10.1007/s00262-012- 1241-5.
22. Chen, X., Wang, Y., Wang, J., Wen, J., Jia, X., Wang, X. og Zhang, H. (2018). Akkumulering af T-hjælper 22-celler, interleukin-22 og myeloid-afledte suppressorceller fremmer gastrisk cancerprogression hos ældre patienter. Oncol. Lett. 16, 253-261. https://doi.org/10.3892/ol.2018.8612.
23. Doulabi, H., Rastin, M., Shabahangh, H., Maddah, G., Abdollahi, A., Nosratabadi, R., Esmaeili, SA, og Mahmoudi, M. (2018). Analyse af Th22-, Th17- og CD4(+)-celler, der co-producerer IL-17/IL-22 på forskellige stadier af human tyktarmskræft. Biomed. Pharmacother. 103, 1101-1106. https://doi.org/10.1016/j.biopha.2018.04.147.
24. Zeng, H., Liu, Z., Wang, Z., Zhou, Q., Qi, Y., Chen, Y., Chen, L., Zhang, P., Wang, J., Chang, Y. ., et al. (2020). Intratumoral IL22-producerende celler definerer immunoevasiv subtype muskelinvasiv blærecancer (2017). En beskyttende funktion af IL-22BP ved iskæmi-reperfusion og acetaminophen-induceret leverskade. J. Immunol. 199, 4078-4090. https://doi. org/10.4049/jimmunol.1700587.
25. Jiang, R., Wang, H., Deng, L., Hou, J., Shi, R., Yao, M., Gao, Y., Yao, A., Wang, X., Yu, L. ., og Sun, B. (2013). IL-22 er relateret til udviklingen af human tyktarmskræft ved aktivering af STAT3. BMC Cancer 13, 59. https://doi.org/10.1186/1471-2407-13-59.
26. Fukui, H., Zhang, X., Sun, C., Hara, K., Kikuchi, S., Yamasaki, T., Kondo, T., Tomita, T., Oshima, T., Watari, J. ., et al. (2014). IL-22 produceret af cancerassocierede fibroblaster fremmer invasion af mavekræftceller via STAT3- og ERK-signalering. Br. J. Cancer 111, 763-771. https://doi.org/ 10.1038/bjc.2014.336.
27. Liu, T., Peng, L., Yu, P., Zhao, Y., Shi, Y., Mao, X., Chen, W., Cheng, P., Wang, T., Chen, N. ., et al. (2012). Øget cirkulerende Th22- og Th17-celler er forbundet med tumorprogression og patientoverlevelse i human gastrisk cancer. J. Clin. Immunol. 32, 1332-1339. https://doi.org/10.1007/ s10875-012-9718-8.
28. Niccolai, E., Taddei, A., Ricci, F., Rolla, S., D'Elios, MM, Benagiano, M., Bechi, P., Bencini, L., Ringressi, MN, Pini, A. ., et al. (2016). Intratumorale IFN-gamma-producerende Th22-celler korrelerer med TNM-stadieinddeling og de værste resultater i bugspytkirtelkræft. Clin. Sci. 130, 247-258. https:// doi.org/10.1042/CS20150437.
29. Xu, X., Tang, Y., Guo, S., Zhang, Y., Tian, Y., Ni, B. og Wang, H. (2014). Forøgede intratumorale interleukin 22-niveauer og frekvenser af interleukin 22-producerende CD4+ T-celler korrelerer med bugspytkirtelkræftprogression. Pancreas 43, 470-477. https://doi.org/10.1097/MPA.000000000000 0055.
30. Kotenko, SV, Izotova, LS, Mirochnitchenko, OV, Esterova, E., Dickensheets, H., Donnelly, RP, og Pestka, S. (2001). Identifikation af det funktionelle interleukin-22 (IL-22) receptorkompleks: IL-10R2-kæden (IL-10Rbeta ) er en fælles kæde af både IL{{7 }} og IL-22 (IL- 10--relaterede T-celle-afledt inducerbar faktor, IL-TIF) receptorkomplekser. J. Biol. Chem. 276, 2725-2732. https://doi.org/10.1074/jbc.M0078 37200.
31. Ouyang, W. og O'Garra, A. (2019). IL-10 familiecytokiner IL-10 og IL- 22: fra grundvidenskab til klinisk oversættelse. Immunity 50, 871-891. https://doi.org/10.1016/j.immuni.2019.03.020.
32. Kempski, J., Giannou, AD, Riecken, K., Zhao, L., Steglich, B., L€ucke, J., Garcia-Perez, L., Karstens, KF, Wo¨ stemeier, A. Nawrocki, M., et al. (2020). IL22BP medierer antitumorvirkningerne af lymfotoksin mod kolorektale tumorer hos mus og mennesker. Gastroenterologi 159, 1417– 1430.e3. https://doi.org/10.1053/j.gastro.2020.06.033.
33. Kotenko, SV, Izotova, LS, Mirochnitchenko, OV, Esterova, E., Dickensheets, H., Donnelly, RP, og Pestka, S. (2001). Identifikation, kloning og karakterisering af en ny opløselig receptor, der binder IL-22 og neutraliserer dets aktivitet. J. Immunol. 166, 7096-7103. https://doi. org/10.4049/jimmunol.166.12.7096.
34. Dudakov, JA, Hanash, AM og van den Brink, MRM (2015). Interleukin-22: immunbiologi og patologi. Annu. Rev. Immunol. 33, 747-785. https://doi.org/10.1146/annurev-immunol-032414-112123.
35. Wolk, K., Kunz, S., Witte, E., Friedrich, M., Asadullah, K., og Sabat, R. (2004). IL-22 øger vævs medfødte immunitet. Immunity 21, 241-254. https://doi.org/10.1016/j.immuni.2004.07.007.
36. Sabat, R., Ouyang, W. og Wolk, K. (2014). Terapeutiske muligheder i IL-22-IL-22R1-systemet. Nat. Rev. Drug Discov. 13, 21-38. https://doi. org/10.1038/nrd4176.
37. Zenewicz, LA, Yancopoulos, GD, Valenzuela, DM, Murphy, AJ, Stevens, S. og Flavell, RA (2008). Medfødt og adaptivt interleukin-22 beskytter mus mod inflammatorisk tarmsygdom. Immunity 29, 947-957. https://doi.org/10.1016/j.immuni.2008.11.003.
38. Gronke, K., Herna´ndez, PP, Zimmermann, J., Klose, CSN, Kofoed Branzk, M., Guendel, F., Witkowski, M., Tizian, C., Amann, L., Schumacher, F., et al. (2019). Interleukin-22 beskytter intestinale stamceller mod genotoksisk stress. Nature 566, 249–253. https://doi.org/10.1038/ s41586-019-0899-7.
39. Saxton, RA, Henneberg, LT, Calafiore, M., Su, L., Jude, KM, Hanash, AM, og Garcia, KC (2021). De vævsbeskyttende funktioner af interleukin-22 kan afkobles fra pro-inflammatoriske virkninger gennem strukturbaseret design. Immunity 54, 660-672.e9. https://doi.org/10. 1016/j.immuni.2021.03.008.
40. Dumoutier, L., Louahed, J. og Renauld, JC (2000). Kloning og karakterisering af IL-10--relateret T-celle-afledt inducerbar faktor (IL-TIF), et nyt cytokin, der er strukturelt relateret til IL-10 og inducerbart af IL-9. J. Immunol. 164, 1814–1819. https://doi.org/10.4049/jimmunol.164. 4.1814.
41. Lejeune, D., Dumoutier, L., Constantinescu, S., Kruijer, W., Schuringa, JJ, og Renauld, JC (2002). Interleukin-22 (IL-22) aktiverer JAK/STAT-, ERK-, JNK- og p38 MAP-kinasevejene i en rotte-hepatomcellelinje. Stier, der er delt med og adskilt fra IL-10. J. Biol. Chem. 277, 33676-33682. https://doi.org/10.1074/jbc.M204204200.
42. Nagalakshmi, ML, Rascle, A., Zurawski, S., Menon, S. og de Waal Malefyt, R. (2004). Interleukin-22 aktiverer STAT3 og inducerer IL-10 af colonepitelceller. Int. Immunopharmacol. 4, 679-691. https://doi. org/10.1016/j.intimp.2004.01.008.
43. Mitra, A., Raychaudhuri, SK og Raychaudhuri, SP (2012). IL-22-induceret celleproliferation reguleres af PI3K/Akt/mTOR-signaleringskaskade. Cytokin 60, 38-42. https://doi.org/10.1016/j.cyto.2012.06.316.
44. Bachmann, M., Ulziibat, S., H€ ardle, L., Pfeilschifter, J., og M€ uhl, H. (2013). IFNalpha konverterer IL-22 til et cytokin, der effektivt aktiverer STAT1 og dets downstream-mål. Biochem. Pharmacol. 85, 396-403. https://doi.org/10.1016/j.bcp.2012.11.004.
45. Zheng, Y., Valdez, PA, Danilenko, DM, Hu, Y., Sa, SM, Gong, Q., Abbas, AR, Modrusan, Z., Ghilardi, N., de Sauvage, FJ og Ouyang , W. (2008). Interleukin-22 formidler tidlig værtsforsvar mod at vedhæfte og udrydde bakterielle patogener. Nat. Med. 14, 282-289. https://doi. org/10.1038/nm1720.
46. Andoh, A., Zhang, Z., Inatomi, O., Fujino, S., Deguchi, Y., Araki, Y., Tsujikawa, T., Kitoh, K., Kim-Mitsuyama, S., Takayanagi A., et al. (2005). Interleukin-22, et medlem af IL-10-underfamilien, inducerer inflammatoriske reaktioner i subepiteliale myofibroblaster i colon. Gastroenterology 129, 969-984. https://doi.org/10.1053/j.gastro.2005.06.071.
47. Tufman, A., Huber, RM, Vo¨lk, S., Aigner, F., Edelmann, M., Gamarra, F., Kiefl, R., Kahnert, K., Tian, F., Boulesteix, AL, et al. (2016). Interleukin-22 er forhøjet ved skylning fra patienter med lungekræft og andre lungesygdomme. BMC Cancer 16, 409. https://doi.org/10.1186/s12885-016- 2471-2.
48. Voigt, C., May, P., Gottschlich, A., Markota, A., Wenk, D., Gerlach, I., Voigt, S., Stathopoulos, GT, Arendt, KAM, Heise, C., et al. (2017). Kræftceller inducerer interleukin-22 produktion fra hukommelse CD4(+) T-celler via interleukin-1 for at fremme tumorvækst. Proc. Natl. Acad. Sci. USA 114, 12994-12999. https://doi.org/10.1073/pnas.17051 65114.
49. Markota, A., Endres, S. og Kobold, S. (2018). Målretning af interleukin-22 til cancerterapi. Hum. Vaccine. Immunother. 14, 2012-2015. https:// doi.org/10.1080/21645515.2018.1461300.
50. Ewens, A., Mihich, E. og Ehrke, MJ (2005). Fjernmetastase fra subkutant dyrket E0771 medullært brystadenokarcinom. Anticancer Res. 25, 3905-3915.
51. Sugiura, K. og Stock, CC (1952). Undersøgelser i et tumorspektrum. I. Sammenligning af virkningen af methylbis (2-chlorethyl)amin og 3-bis(2-chlorethyl)aminomethyl-4-methoxymethyl -5-hydroxy{{7} }methylpyridin på væksten af en række muse- og rottetumorer. Cancer 5, 382-402. https://doi.org/10.1002/1097-0142(195203)5:2<382::aidcncr2820050229>3.0.co;2-3.
52. Renier, N., Wu, Z., Simon, DJ, Yang, J., Ariel, P., og Tessier-Lavigne, M. (2014). iDISCO: en enkel, hurtig metode til at immunmærke store vævsprøver til volumenbilleddannelse. Celle 159, 896-910. https://doi.org/10. 1016/j.cell.2014.10.010.
53. Kleinschmidt, D., Giannou, AD, McGee, HM, Kempski, J., Steglich, B., Huber, FJ, Ernst, TM, Shiri, AM, Wegscheid, C., Tasika, E., et al.
54. O'Donnell, JS, Madore, J., Li, XY og Smyth, MJ (2020). Tumor iboende og ydre immunfunktioner af CD1
55. Semin. Cancer Biol. 65, 189-196. https://doi.org/10.1016/j.semcancer.2019.11.013. 55. Molfetta, R., Zitti, B., Lecce, M., Milito, ND, Stabile, H., Fionda, C., Cippitelli, M., Gismondi, A., Santoni, A., og Paolini, R. (2020). CD155: et multifunktionelt molekyle i tumorprogression. Int. J. Mol. Sci. 21, 922. https://doi.org/10.3390/ijms21030922.
56. Gao, J., Zheng, Q., Xin, N., Wang, W., og Zhao, C. (2017). CD155, et onko-immunologisk molekyle i humane tumorer. Cancer Sci. 108, 1934-1938. https://doi.org/10.1111/cas.13324.
57. Morimoto, K., Satoh-Yamaguchi, K., Hamaguchi, A., Inoue, Y., Takeuchi, M., Okada, M., Ikeda, W., Takai, Y., og Imai, T. ( 2008). Interaktion mellem cancerceller og blodplader medieret af Necl-5/poliovirus-receptor øger cancercellemetastasering til lungerne. Onkogen 27, 264-273. https://doi.org/10.1038/sj.onc.1210645.
58. Chan, CJ, Martinet, L., Gilfillan, S., Souza-Fonseca-Guimaraes, F., Chow, MT, Town, L., Ritchie, DS, Colonna, M., Andrews, DM, og Smyth, MJ (2014). Receptorerne CD96 og CD226 modsætter sig hinanden i reguleringen af naturlige dræbercellefunktioner. Nat. Immunol. 15, 431-438. https://doi.org/10.1038/ni.2850.
59. Fuchs, A., Cella, M., Giurisato, E., Shaw, AS, og Colonna, M. (2004). Forkant: CD96 (taktil) fremmer NK-celle-målcelleadhæsion ved at interagere med poliovirus-receptoren (CD155). J. Immunol. 172, 3994-3998. https://doi.org/10.4049/jimmunol.172.7.3994.
60. Jarosch, S., Ko¨hlen, J., Wagner, S., D'Ippolito, E. og Busch, DH (2022). ChipCytometri til multiplekset påvisning af protein- og mRNA-markører på humane FFPE-vævsprøver. STAR Protoc. 3, 101374. https://doi.org/10.1016/j.xpro.2022.101374.
61. Chauvin, JM, Ka, M., Pagliano, O., Menna, C., Ding, Q., DeBlasio, R., Sanders, C., Hou, J., Li, XY, Ferrone, S., et al. (2020). IL15-stimulering med TIGIT-blokade reverserer CD155-medieret NK-celledysfunktion i melanom. Clin. Cancer Res. 26, 5520-5533. https://doi.org/10.1158/ 1078-0432.CCR-20-0575.
62. Weulersse, M., Asrir, A., Pichler, AC, Lemaitre, L., Braun, M., Carrie´, N., Joubert, MV, Le Moine, M., Do Souto, L., Gaud, G., et al. (2020). Eomesafhængigt tab af den co-aktiverende receptor CD226 begrænser CD8(+) T-cellernes antitumorfunktioner og begrænser effektiviteten af cancerimmunterapi. Immunity 53, 824-839.e10. https://doi.org/10.1016/j.immuni. 2020.09.006.
63. Braun, M., Aguilera, AR, Sundarrajan, A., Corvino, D., Stannard, K., Krumeich, S., Das, I., Lima, LG, Meza Guzman, LG, Li, K., et al. (2020). CD155 på tumorceller driver resistens mod immunterapi ved at inducere nedbrydningen af den aktiverende receptor CD226 i CD8(+) T-celler. Immunity 53, 805-823.e15. https://doi.org/10.1016/j.immuni. 2020.09.010.
64. Lepletier, A., Madore, J., O'Donnell, JS, Johnston, RL, Li, XY, McDonald, E., Ahern, E., Kuchel, A., Eastgate, M., Pearson, SA, et al. (2020). Tumor CD155-ekspression er forbundet med resistens over for antiPD1-immunterapi ved metastatisk melanom. Clin. Cancer Res. 26, 3671-3681. https://doi.org/10.1158/1078-0432.CCR-19-3925.
65. Newman, AM, Steen, CB, Liu, CL, Gentles, AJ, Chaudhuri, AA, Scherer, F., Khodadoust, MS, Esfahani, MS, Luca, BA, Steiner, D., et al. (2019). Bestemmelse af celletypeoverflod og ekspression fra bulkvæv med digital cytometri. Nat. Biotechnol. 37, 773-782. https://doi.org/10.1038/s41587-019-0114-2.
66. Soriani, A., Zingoni, A., Cerboni, C., Iannitto, ML, Ricciardi, MR, Di Gialleonardo, V., Cippitelli, M., Fionda, C., Petrucci, MT, Guarini, A., et al. (2009). ATM-ATR-afhængig opregulering af DNAM-1- og NKG2D-ligander på multipelt myelomceller med terapeutiske midler resulterer i øget NK-cellemodtagelighed og er forbundet med en senescent fænotype. Blood 113, 3503-3511. https://doi.org/10.1182/blood- 2008-08-173914.