Pyroptose på forkant med anticancer-immunitet
Nov 14, 2023
Abstrakt
Tumorresistens over for apoptose og det immunsuppressive tumormikromiljø er to væsentlige bidragydere til dårlige terapeutiske responser under cancerintervention. Pyroptosis, en lytisk og inflammatorisk programmeret celledødsvej adskilt fra apoptose, har efterfølgende vakt bemærkelsesværdig interesse blandt kræftforskere for dets potentiale til at blive klinisk udnyttet og til at løse disse problemer. Nylige beviser indikerer, at pyroptose-induktion i tumorceller fører til et robust inflammatorisk respons og markant tumorregression. Underliggende dens antitumoreffekt medieres pyroptose af poredannende gastrinproteiner, der letter immuncelleaktivering og -infiltration gennem deres frigivelse af pro-inflammatoriske cytokiner og immunogent materiale efter cellebrud. I betragtning af dens inflammatoriske natur kan afvigende pyroptose dog også være impliceret i dannelsen af et tumorunderstøttende mikromiljø, hvilket fremgår af opreguleringen af gastrinproteiner i visse kræftformer. I denne gennemgang introduceres de molekylære veje, der fører til pyroptose, efterfulgt af en oversigt over de tilsyneladende sammenfiltrede forbindelser mellem pyroptose og kræft. Vi beskriver, hvad der er kendt om virkningen af pyroptosis på anticancer immunitet og giver indsigt i potentialet ved at udnytte pyroptosis som et værktøj og anvende det til nye eller eksisterende anticancerstrategier.

cistanche tubulosa-forbedrer immunsystemet
Nøgleord: Pyroptose, Antitumorimmunitet, Gasdermin, cancer, Immunlandskabet
Baggrund
Selvom opdagelsen længe unddrager sig, har eksistensen og den fysiologiske betydning af programmerede celledødsveje (PCD) adskilt fra apoptose fået stigende interesse i de senere år, delvist på grund af den høje forekomst af apoptoseresistens i tumorer [1]. Af disse forskellige former har pyroptose, en nekrotisk og lytisk PCD, adskilt sig fra andre ved sin evne til at fremkalde en kraftig inflammatorisk respons [2]. I lighed med nekroptose, en programmeret form for nekrose, menes pyroptose primært at eksistere som et forsvar mod patogener ved at udløse en antimikrobiel reaktion gennem frigivelse af immunogent cellulært indhold, herunder skadesassocierede molekylære mønstre (DAMP'er) og inflammatoriske cytokiner [3]. I modsætning til nekroptose, som er medieret af blandet lineage kinase domæne-lignende pseudokinase (MLKL) og caspase-uafhængig [4], medieres pyroptose af gastrin (GSDM) familieproteiner og, ligesom apoptose, stort set caspase-afhængig [5]. Andre former for reguleret nekrose, såsom ferroptose, er også for nylig dukket op [6-10] og sammenlignes sammen med nekrose og apoptose i tabel 1.
Bestræbelsen på at overvinde kræft og dens alvorlige globale konsekvenser har gentagne gange ført til, at vi står over for snyderiet med død og opdagelse af kræftceller. Selvom det stadig er en relativt sløret proces, repræsenterer pyroptose et potentielt udnytteligt og potent middel til ikke kun at omgå apoptoseresistens, men til at aktivere tumorspecifik immunitet og/eller øge effektiviteten af eksisterende terapier. Her diskuterer vi den nuværende viden om pyroptose i forbindelse med anticancer-immunitet for at give indsigt i dets potentiale til at bekæmpe kræft.
Tabel 1 Sammenligning af udvalgte celledødsformer

Pyroptose på et øjeblik
Pyroptose blev først beskrevet i 1990'erne i makrofager inficeret med S. enterica serovar Typhimurium (S. Typhimurium) [11] og S. flexneri [12]. Selvom det oprindeligt blev anset for at være en apoptoseproces, viste yderligere undersøgelser, at denne bakterie-inducerede celledød var stærkt afhængig af caspase-1 [13], en caspase, der ikke er involveret i apoptoseudførelse (dvs. caspase{{6 }}). Kort efter, i 2001, blev denne PCD opfundet pyroptosis, eller "flammende fald", for at beskrive frigivelsen af proinflammatoriske signaler fra de døende celler. Pyroptotiske celler deler flere funktioner med apoptotiske celler, såsom kromatinkondensering og DNA-fragmentering, men kan skelnes ved deres intakte kerne, poredannelse, cellehævelse og osmotisk lysis (tabel 1) [14]. Generelt opnås pyroptotisk cellebrud gennem den caspase-medierede aktivering af poredannende GSDM-proteiner efter binding af DAMP'er eller patogenassocierede molekylære mønstre (PAMP'er) [15]. Disse samme caspaser kan også direkte eller indirekte bidrage til modningen af pro-inflammatoriske cytokiner, der sammen med DAMP'er initierer eller fortsætter en inflammatorisk respons, når de frigives. Selvom den tjener en vigtig beskyttende rolle i patogenopløsning, er pyroptose blevet impliceret som en komplicerende faktor i flere menneskelige sygdomme, såsom hjerte-kar-sygdomme [16], neurodegenerativ sygdom [17] og HIV/AIDS [18]. Metaboliske lidelser som diabetes kan også fremmes af pyroptose gennem kronisk inflammation og produktion af insulin-interfererende cytokiner [19]. Ved kræft synes pyroptoses rolle at være dobbeltkantet. På den ene side kan pyroptose hurtigt føre til tumorregression, og på den anden side kan det lette udviklingen af tumormikromiljøet. Derfor kan kræftceller enten undertrykke eller anspore pyroptose for at understøtte deres progression afhængigt af konteksten.

Fordele ved cistanche tubulosa-styrke immunsystemet
Molekylære mekanismer for pyroptose
sandsynligvis vil stige i fremtiden, er der i øjeblikket to principielle og flere alternative veje, der er blevet belyst til dato (fig. 1). I de vigtigste veje induceres pyroptose af GSDMD og involverer inflammatorisk caspase-1 (kanonisk vej) eller caspase-4/5 (eller musecaspase-11) (ikke-kanonisk vej). Af de alternative veje er den mest betragtede GSDME-induceret pyroptose gennem caspase-3 [5], selvom forskellige veje, der involverer andre GSDM-familiemedlemmer og caspaser eller granzymer, også er blevet rapporteret. Strukturelt består GSDMA, GSDMB, GSDMC, GSDM D og GSDME alle af et N-terminalt poredannende domæne og et C-terminalt regulatorisk domæne, der er forbundet af en linkerregion [20]. Under normale forhold tillader linkerregionen det C-terminale domæne at folde over toppen af det N-terminale domæne og funktionelt inhibere dets letale aktivitet. Spaltning på linkerstedet af caspaser eller granzymer opgiver imidlertid denne auto-inhiberende struktur og fører til translokationen af det N-terminale domænefragment ind i plasma- og mitokondriemembranerne. Når først det er bundet, oligomeriserer det N-terminale domæne og danner -tønde transmembrane porer, der letter udskillelsen af pro-inflammatorisk indhold, såsom interleukin (IL)- 1 og IL-18 og forårsager cellelyse gennem osmotisk barriere forstyrrelse [21]. I de efterfølgende afsnit gives en oversigt over de trin, der er involveret i hver af de veje, der fører til pyroptose.
Kanonisk inflammasomvej
I den kanoniske inflammasomvej til pyroptose fører genkendelse af DAMP'er (f.eks. fibrinogen, varmechokproteiner, DNA) og/eller PAMP'er (f.eks. flagellin, glycaner, lipopolysaccharider (LPS'er)) af mønstergenkendelsesreceptorer (PRR'er) til aktivering af respektive cytosoliske signalkomplekser kaldet inflammasomer, som typisk består af et sensorprotein, adapter og effektorcaspase [22]. Selvom en række PRR'er, såsom NOD-lignende receptorer (NLR'er) og toll-lignende receptorer (TLR'er), er involveret i denne proces, vides kun en delmængde af disse at være i stand til direkte at samle inflammasomer og aktivere cysteinproteasen caspase{ {3}} [23]. Specifikt inkluderer PRR'erne/inflammasomsensorerne i denne undergruppe NLR-familiens pyrindomæneholdige (NLRP)1, NLRP3, NLRP4, fraværende i melanom 2 (AIM2) og Pyrin. Efter deres aktivering interagerer størstedelen af disse sensorer med det adapterprotein apoptose-associerede speck-lignende protein indeholdende CARD (ASC), som aktiverer caspase-1 gennem procaspase-1 rekruttering og spaltning. Ud over at frigøre og aktivere det dødelige N-terminale domæne af GSDMD (GSDMD-N), modner caspase-1 også pro-IL-1 og pro-IL-18 til IL{{22 }} og IL-18, som frigives gennem de nekrotiske membranporer dannet af GSDM DN [24].

Fordele ved cistanche tubulosa-Antitumor
Ikke-kanonisk inflammasomvej
I modsætning til den kanoniske inflammasomvej er den ikke-kanoniske inflammasomvej uafhængig af caspase-1 og i stedet afhængig af caspase-4 og -5 hos mennesker og caspase-11 hos mus [25]. Aktiveringen af disse caspaser sker gennem den direkte binding af LPS til respektive pro-caspaser og omgår behovet for inflammasomsensorer. Med oprindelse i gram-negative bakterier kan cytoplasmatisk levering af LPS forekomme gennem infektion eller membranvesikler. Selvom disse caspaser ikke aktiverer IL-1 og IL-18 direkte, fører deres udløsning af pyroptose gennem GSDMD-spaltning til en udstrømning af kaliumioner, der aktiverer NLRP3-inflammasomet og opregulerer virkningen af caspase{{11} } [26].

Fig. 1 Skematisk over pyroptose signalveje. Den kanoniske inflammasomvej til pyroptose induceres af forskellige stimuli og resulterer i caspase-1-aktivering, mens den ikke-kanoniske vej induceres af LPS og resulterer i caspase-4/5-aktivering. Både aktiveret caspase-1 og caspase-4/5 spalter autoinhiberet GSDMD ved sin linkerregion for at frigøre det N-terminale domæne af GSDMD (GSDMD-N) fra dets repressor C-terminale domæne (GSDMD-C) . GSDMD-N translokerer derefter til plasmamembranen og gennemgår oligomerisering og poredannelse, hvilket forårsager en stigning i osmotisk tryk og til sidst cellelyse. Poredannelse letter også frigivelsen af intracellulært indhold og de inflammatoriske cytokiner IL-18 og IL-1 efter deres aktivering af caspase-1. Gennem alternative veje kan GSDMD også spaltes af caspase-8, svarende til GSDME, som desuden kan spaltes af caspase-3 og granzyme B. Bortset fra kan GSDMD-N og GSDMB-N også aktiveres hhv. NLRP3 eller caspase-4. I de andre alternative veje spaltes GSDMB af caspase-1 eller granzym A, mens GSDMC spaltes af caspase-8 og transkriptionelt opreguleres under hypoxi gennem pSTAT3-interaktion med programmeret dødsligand 1. GSDMA's mekanismer -medieret pyroptose er endnu ikke belyst. AIM2, fraværende i melanom 2; DAMP'er, fare-associerede molekylære mønstre; FADD, Fas-associeret dødsdomæneprotein; GSDMA/B/C/D/E, gastrin A/B/C/D/E; IL, interleukin; LPS, lipopolysaccharider; NLRP1/3/4, NLR-familiens pyrindomæne indeholdende 1/3/4; PAMP'er, patogen-associerede molekylære mønstre; RIPK1, receptor-interagerende serin/threonin-proteinkinase 1; pSTAT3, phospho-signaltransducer og aktivator af transkription 3; TAK1 (også kendt MAP 3 K7), transformerende vækstfaktor beta-aktiveret kinase 1
Alternative veje
Det blev afsløret, at i visse sammenhænge, såsom kemoterapi eller målrettet cancerterapi, kan en vej fra apoptose til pyroptose induceres gennem caspase- 3 [5]. Selvom det primært er forbundet med apoptoseudførelse og morfologiske ændringer, kan caspaser-3 mediere pyroptose gennem spaltningen af GSDME, hvilket på samme måde fører til GSDME-N-poredannelse og membranpermeabilisering. Når GSDME-niveauerne er høje, bliver pyroptose hurtigt tilskyndet efter aktivering af caspase-3, men når GSDME-niveauerne er lave, anmodes der i stedet om apoptose [5]. I betragtning af, at de fleste af proteaserne involveret i pyroptose også kan mediere apoptose, når deres respektive GSDM-protein er fraværende [27, 28], tyder det på, at balancen mellem pyroptose og apoptose i høj grad afhænger af GSDM-proteinniveauer. Denne opfattelse kræver dog yderligere beviser, da den modsiges af undersøgelser, der udfordrer GSDME's rolle i pyroptose [29, 30]. Adskillige andre alternative pyroptose-veje er også blevet rapporteret og omfatter kort fortalt GSDMD-spaltning med caspase-8 [31], GSDME-spaltning med caspase-8 [32] eller granzyme B (GzmB) [33], GSDMB-spaltning med caspase-1 [34] eller granzym A (GzmA) [35], GSDMC-spaltning med caspase- 8 og transkriptionel opregulering ved hypoxiaktiveret programmeret dødsligand 1 (PD-L1) og pSTAT3 [36] og GSDMA-poredannelse gennem en ukendt mekanisme [37].

Fordele ved cistanche tubulosa-Antitumor
Pyroptose og dens bestanddele i kræft
Den uklare rolle af pyroptosis i cancer synes at være kontekstuel og afhængig af celletype, genetik og varighed af pyroptose-induktion. Efter afvigende ekspression og forlænget aktivitet kan GSDM'er, inflammasomer og/eller pro-inflammatoriske cytokiner bidrage til tumorpatologi ved at inducere immunsuppressive celler, fremme epitel-til-mesenchymal overgang og/eller opregulere matrix-metalloproteinaser til ekstracellulær matrix-omdannelse [38]. For nylig har det vist sig, at pyroptose kan sætte skub i tumorprogression i kolorektal cancer (CRC) ved at øge ekspressionen af prolifererende cellekerneantigen gennem højmobilitetsgruppeboksprotein 1 (HMGB1) frigivelse [39]. I de hypoxiske områder af MDA-MB-231 xenotransplantater i nøgne mus er en PD-L1-medieret apoptose til pyroptose-omskifter også blevet rapporteret at lette kronisk tumornekrose [36], som kan fremme tumorvækst og hæmmer antitumorimmunitet [40]. Ved at sidestille disse effekter kan pyroptose imidlertid også begynde tumorundertrykkelse og udførelse [5, 33, 41-43]. I hepatocellulært karcinom (HCC) celler, for eksempel, hæmmede pyroptose-induktion gennem NLRP3-inflammasomaktivering signifikant metastatisk potentiale in vitro og tumorvækst in vivo i en muse xenograft-model [44]. Ideen om, at pyroptoseundertrykkelse giver en selektiv fordel i HCC-celler, understøttes yderligere af den observation, at caspase-1 mRNA- og proteinniveauer aktivt nedreguleres i humane HCC-væv og cellelinjer [45].
I betragtning af den dobbelte rolle af pyroptosis er dens molekylære komponenter, som man kunne forvente, unormalt og differentielt udtrykt på tværs af forskellige cancerformer (tabel 2). GSDM'er er for eksempel dereguleret i blandt andet bryst-, mave-, livmoderhals- og lungecancer og har vist sig at kontrollere spredning, metastaser, terapeutisk resistens og antitumorimmunitet, mens de virker som enten onkogener eller tumorundertrykkere [65, 66] . I gastrisk cancer (GC) blev GSDMD-ekspression markant reduceret og resulterede i øget tumorproliferation både in vitro og in vivo, muligvis ved at accelerere S/G2-celleovergang [57]. Omvendt var GSDMD-proteinniveauer bemærkelsesværdigt øget i ikke-småcellet lungecancer (NSCLC) sammenlignet med tilstødende kontroller og var forbundet med større tumorstørrelse, mere avancerede tumorknudemetastasestadier og, i lungeadenokarcinom (LUAD), dårligere prognose [27 ]. Desuden svækkede GSDMD-knockdown i NSCLC-celler deres spredning gennem apoptoseinduktion og EGFR/Akt-signalhæmning. I lighed med GSDMD blev GSDME-ekspression også reduceret i GC, såvel som i brystkræft og CRC [47, 59, 67]. Især i CRC øgede GSDME-knockdown cellulær invasivitet og koloniantal, mens GSDME-overekspression nedsatte cellevækst og kolonidannelse [51]. Når de kirurgiske prøver af primær GC blev undersøgt, blev GSDMC-ekspression kun set i visse tilfælde, dog kontrastmæssigt opreguleret i CRC, hvor det fremmede carcinogenese og proliferation in vitro og tumorvækst in vivo [50]. Højere niveauer af GSDMB er også blevet korreleret med højere rater af metastaser og lavere overlevelsesrater hos brystkræftpatienter [46]. Blandt andre pyroptose-bestanddele var AIM2-ekspression markant nedsat eller fraværende i størstedelen af CRC-tumorer observeret og bundet til dårlige patientresultater [52]. Lave AIM2-niveauer korrelerede også med mere avanceret tumorprogression i HCC, hvorimod AIM2-overekspression svækkede celleproliferation og invasion [61]. NLRP1-niveauer blev tilsvarende formindsket i CRC-tumorvæv og forbundet med øget metastase og dårlig overlevelse [54]. Ikke desto mindre er NLRP1 også blevet impliceret i tumorstøtte. I melanom, for eksempel, blev NLRP1 fundet at bidrage til erhvervet lægemiddelresistens [62], og i brystkræft blev det overudtrykt i primært væv og forbundet med lymfeknudemetastase [49]. Hos mus fremmede NLRP1 også brystkræftproliferation, invasion, metastase og tumorigenicitet [49]. Fortsat, caspase-1 mRNA-niveauer blev signifikant reduceret i brystkræftvævet hos patienter [48], og tab af caspase-1 var forbundet med prostata [64] og CRC [53] tumorigenese. På trods af sin tilsyneladende tumor-undertrykkende rolle i disse kræftformer, blev caspase-1-ekspression markant øget i humant gliomvæv og foreslået at spille en nøglerolle i gliomcelleproliferation og migration gennem dets kontrol af pyroptose og efterfølgende bidrag til den lokale tumor mikromiljø [60].
Det er overflødigt at sige, at belysning af forholdet mellem pyroptose og kræft vil fortsat kræve omfattende undersøgelser. I betragtning af manglen på konsensus på tværs af undersøgelser vil en bemærkelsesværdig udfordring være at skelne og sammensætte de tumorspecifikke roller og regulering af hver pyroptotisk molekylær komponent. Med flere veje, der fører til pyroptose og flere bestanddele, der overlapper hinanden, tyder det på, at karakterisering af hver vejs samlede tumorspecifikke effekt, snarere end de individuelle effekter af hver komponent, måske er en mere effektiv strategi til at forstå og/eller forudse en tumors modulering af pyroptose. Ikke desto mindre, da nye pyroptose-veje stadig bliver opdaget, kan huller i vores viden forhindre os i at forstå større modulerende temaer, indtil alle respektive signalveje er belyst og i overensstemmelse hermed organiseret inden for det nuværende skema eller et nyt.
Tabel 2 Ekspression af udvalgte pyroptotiske komponenter i cancere og deres associerede konsekvens(er)
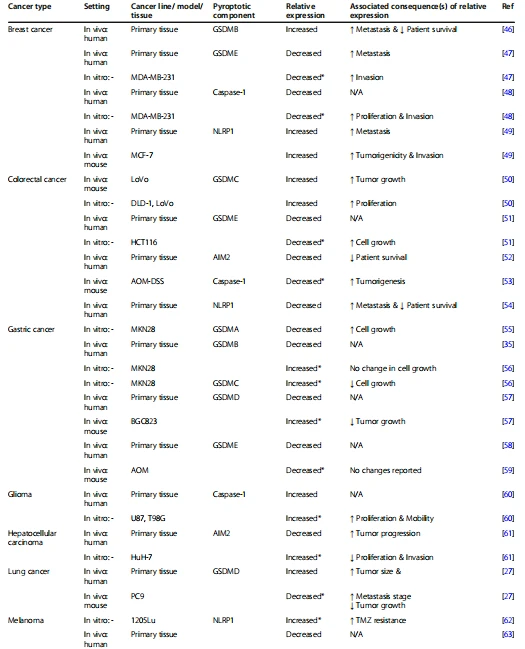
Tabel 2 Ekspression af udvalgte pyroptotiske komponenter i cancere og deres associerede konsekvens(er) (fortsat)

Forbindelser mellem pyroptose og anticancer immunitet
En celledøds evne til at fremkalde et adaptivt immunrespons er kendt som immunogen celledød (ICD). Især er det immunogene potentiale af en døende cancercelle defineret af dens antigene og adjuvansegenskaber, såsom tilstedeværelsen af henholdsvis tumorassocierede antigener og frigivelsen af endogene DAMP'er [68, 69]. I modsætning til apoptose, som grundlæggende er en immuntolerant proces, besidder pyroptose det molekylære maskineri til at fremkalde en robust inflammatorisk respons og foreslås i nogle tilfælde at være en form for ICD [33]. Mens sammenhængen mellem pyroptose og anticancer-immunitet endnu ikke er klar, viser et stigende antal undersøgelser, at pyroptose-medieret tumorclearance opnås gennem forstærkning af immunaktivering og -funktion. Ud over at blive udløst spontant gennem forskellige stressorer og apoptose-til-pyroptose-switches, kan tumorcellepyroptose induceres direkte af visse immunceller, hvilket tyder på, at pyroptose kan deltage i en positiv feedback-loop i antitumorimmunitet. I de følgende afsnit er de seneste undersøgelser, der implicerer pyroptose i anticancer-immunitet, fremhævet i henhold til det involverede GSDM-protein.

cistanche fordele for mænd styrker immunsystemet
Klik her for at se produkter fra Cistanche Enhance Immunity
【Spørg om mere】 E-mail:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
GSDMA
borat (Phe-BF3) i kombination med guld nanopartikel (NP) levering, Wang et al. rapporteret med succes at levere en muse-isoform af GSDMA, Gsdma3, selektivt i humane HeLa (cervikal), mus EMT6 (mammary) og mus 4 T1 (mammary) cancerceller, hvilket fører til pyroptose i 20-40% af cellerne afhængigt af cellen linje [70]. Når dette leveringssystem blev anvendt på BALB/c-mus, der var subkutant implanteret med 4 T1- eller EMT6-celler efter to ugers vækst, resulterede tre behandlingsrunder med NP-Gsdma3 og Phe-BF3, enten ved intravenøs eller intratumoral injektion, i markant tumorsvind ; og efter 25 dage var tumorbelastningen ubetydelig. Til sammenligning blev der ikke observeret tumorsvind, når NP-Gsdma3 eller Phe-BF3 blev injiceret alene, eller når en mutant ikke-poredannende NP-Gsdma3 og Phe-BF3 blev injiceret sammen, hvilket tyder på, at Gsdma3-funktion var nødvendig for den observerede antitumoreffekt . Interessant nok, i NP-Gsdma3- og Phe-BF3-behandlede BALB/c-mus blev det fundet, at pyroptose i mindre end 15% af 4 T1-tumorceller var tilstrækkelig til at eliminere hele brysttumortransplantatet. Denne tumorregressionseffekt var fraværende i Nu/Nu-mus, der manglede modne T-celler, hvilket dog stærkt indikerer, at tumorelimineringseffekten af Gsdma3-medieret pyroptose, i det mindste delvist, var afhængig af immunsystemet. Følgelig blev en stigning i CD3+ T-celleinfiltration såvel som et fald i CD4+ FOXP3+ T-regulatoriske celler i BALB/c-mus kun set i de 4 T1-tumorer behandlet med NP-Gsdma3 og Phe-BF3. Ydermere forhindrede udtømningen af CD4+- og CD8+-cellepopulationer i denne behandlingsmodel tumorregression, hvilket antyder, at både CTL'er og CD4+ T-hjælperceller spiller en uundværlig rolle under pyroptose-induceret tumor clearance. Sammenlignet med PBS kontrol 4 T1 tumorer afslørede yderligere analyse også, at mens CD4+, CD8+, naturlig dræber (NK) og M1 makrofagcellepopulationer steg i NP-Gsdma3 og Phe-BF3 behandlede tumorer faldt populationerne af monocytter, neutrofiler, myeloid-afledte suppressorceller og M2-makrofager. Ud over øgede IL-1-, IL-18- og HMGB1-serum- og tumorniveauer blev talrige immunstimulerende og antitumoreffektorgener (f.eks. Cd69, Gzma, Gzmb) fundet at være opregulerede og forskellige immunsuppressive og protumorgener gener (fx Csf1, Vegfa, Cd274) nedreguleret i de 4 T1-tumorer behandlet med NP-Gsdma3 og Phe-BF3 i BALB/c-mus [70].
GSDMD
Xi og kolleger fokuserede deres opmærksomhed på cytotoksiske T-lymfocytter (CTL'er), og undersøgte CTL'ers ekspression af GSDM-gener i relation til CD8+ T-cellemarkører i LUAD, lungepladecellekarcinom (LUSC) og melanom tumorprøver ved hjælp af data fra The Cancer Genome Atlas (TCGA) [71]. Af de fem GSDM-genmedlemmer viste kun GSDMD-ekspression en positiv korrelation med CD8+ T-cellemarkørgener (f.eks. CD8A, CD8B, PRF1, GZMA, GZMB og IFNG) i CTL'er på tværs af alle tre tumorkohorter. En positiv korrelation mellem GSDMD og CD8A, GZMB og IFNG-ekspression i CTL'er blev også set i mange andre tumortyper og i 30 primære tumorprøver fra patienter med NSCLC, hvilket yderligere bekræfter associationerne set fra TCGA. Yderligere undersøgelse viste, at ekspressionen af GSDMD i aktiverede CTL'er fra OT-1-mus var signifikant øget sammenlignet med naive T-lymfocytter. På samme måde opregulerede humane CD8+ T-celler GSDMD efter deres aktivering, og i LUAD- og LUSC-vævsprøver blev der set høje niveauer af GSDMD-protein i tumorinfiltrerende lymfocytter (TIL'er). I både OT-1 og human-aktiverede CD8+ T-celler blev aktiveringen af henholdsvis caspase-11 eller caspase-4 forbedret og målrettet dem med kort hårnåle-RNA svækket GSDMD spaltning. Når aktiverede OT-1 T-celler blev dyrket sammen med ovalbumin-udtrykkende Lewis lungecarcinom (3LL-OVA) celler, blev co-lokaliseringen af GSDMD og GzmB observeret i CTL'erne nær deres immunsynapser; desuden blev CTL-cytotoksicitet over for 3LL-OVA-celler formindsket efter GSDMD-knockdown. Lignende resultater blev registreret under anvendelse af humane CTL'er og en H1299 NSCLC-cellelinje [71]. I betragtning af, at en kritisk måde, hvorpå CTL'er dræber tumorceller, er gennem frigivelsen af cytotoksiske molekyler i den immunsynapse, som de danner, blev det spekuleret i, at leveringen af GSDMD og GzmB til effektorcancerceller kan have været mekanismen bag CTL-cytotoksicitet set i denne undersøgelse [71].
GSDMB
Kort efter Xi og kollegers rapport blev en mekanisme for NK- og CTL-induceret tumorcellepyroptose gennem granzymfrigivelse forstærket af adskillige undersøgelser [33, 35, 72]. I modsætning til Xi et al. implicerede Zhou et al. for eksempel involvering af GzmA og GSDMB snarere end GzmB og GSDMD i de cellelinjer, de undersøgte, hvilket understøtter forestillingen om, at en celles reaktion på granzymer og GSDM'er er kontekstuel og afhængig af cellens type [35, 71]. Specifikt blev det fundet, at tvungen ekspression af GSDMB, men ingen andre GSDM-medlemmer i humane embryonale nyrer (HEK)- 293 T-celler, der mangler endogen ekspression af GSDM'er, gav pyroptotisk drab af 293 T-celler af co-dyrket human NK{{10 }}MI-celler [35]. Interessant nok syntes GSDMB-medieret drab af NK-celler at være caspase-uafhængig, da behandling med en pan-caspase-hæmmer ikke havde nogen effekt. Hæmningen af granzymer eller NK-celledegranulering og perforin blokerede imidlertid ikke kun NK-celle-induceret pyroptose, men også GSDMB-spaltning i 293 T-celler. Af de fem humane granzymer i HEK-293F-celler blev det fundet, at kun GzmA hurtigt spaltede GSDMB i et mønster svarende til det, der ses i NK-celledræbende assays. Når GzmA blev elektroporeret ind i GSDMB-rekonstituerede 293 T-celler, resulterede omfattende GSDMB-spaltning og pyroptotisk drab; men når en protease-deficient GzmA S212A-mutant blev elektroporeret, eller en ikke-spaltelig GSDMB K244A-mutant eller K229A/K244A-dobbeltmutant blev udtrykt, var pyroptose-induktion signifikant formindsket. Tilsvarende var GzmA-medieret spaltning af GSDMB påkrævet under fysiologiske betingelser for NK-celle pyroptotisk drab af 293 T-celler, og enhver forstyrrelse af spaltningen, såsom GSDMB-mutantekspression, pegede 293 T-celler mod pyroptoseresistens. I humane cancercellelinjer, der endogent udtrykker GSDMB, specifikt OE19 (esophageal carcinoma), SW837 (CRC) og SKCO1 (CRC), blev det yderligere vist, at GzmA-levering gennem elektroporation eller perforin var tilstrækkelig til at inducere GSDMB-medieret pyroptose [35].
Andre cancercellelinjer med umærkelige GSDMB-niveauer, såsom OE33 (esophageal carcinoma celler) og HCC1954 (brystcancerceller), kunne transskriptionelt induceres til at øge GSDMB-ekspression gennem eksponering for cytokiner, der typisk frigives af aktiverede cytotoksiske lymfocytter, såsom interferon-gamma. (IFN-) og tumornekrosefaktor-alfa (TNF-) [35]. Til gengæld forbedrede IFN-priming signifikant pyroptotisk celledød på tværs af en række af disse cellelinjer, selvom denne effekt i sidste ende var afhængig af GzmA. I lighed med deres inkubation med NK-92MI-celler blev 293 T-celler, der udtrykker CD19 og GSDMB, fundet at gennemgå GSDMB-spaltning og pyroptose som reaktion på inkubation med humane anti-CD19 kimæriske antigenreceptorer (CAR)-T-celler. Denne spaltning og pyroptose-induktion forekom imidlertid ikke, når en ikke-spaltelig version af GSDMB blev udtrykt i 293 T-celler, eller når GZMA blev slået ned i CAR-T-cellerne. Fremover viste gruppen, at selvom GSDMB ikke har nogen ortologer i mus, kan CTL'er genereret fra OT-1 transgene mus bruge muse-GzmA (mGzmA) til at spalte humant GSDMB og inducere pyroptose i muse-MC38 CRC-celler, der udtrykker humant GSDMB. Ved at anvende denne viden på en in vivo-model fandt gruppen ingen nævneværdige forskelle i væksten af indpodede muse-CT26 CRC-celler i BALB/c-mus, uanset om human GSDMB blev rekonstitueret i cellerne eller ej. Det blev efterfølgende fremført, at genkendelsen af CT26-tumorceller af CTL'er i modellen kan være blevet hæmmet af programmeret celledødsprotein 1 (PD-1)-programmeret-dødsligand 1 (PD-L1) interaktion, således, forebyggelse af CTL-levering af mGzmA til mål-CT26-celler og induktion af CT26-cellepyroptose. Bemærkelsesværdigt var det, at gruppen ved at blokere PD-1-PD-L1-binding i modellen gennem PD-1-antistofinjektion var i stand til en smule at reducere væksten af kontrol-CT26-tumorer og næsten fuldstændigt undertrykke væksten af human GSDMB- udtrykker CT26-tumorer. Delvis hæmning af tumorvækst blev også set i CT26-tumorer, der udtrykker den GzmA-resistente dobbeltmutante form af GSDMB under PD-1-antistoftilstanden, men kun i et omfang tæt på kontroltumorer. Gruppen rapporterede også lignende fund ved brug af en mere aggressiv B16-F10 melanom tumormodel i C57BL/6 mus [35]. Tilsammen viste disse resultater ikke kun, at GSDMB-medieret pyroptose virker nedstrøms for GzmA, men at cytotoksiske lymfocytter kan levere GzmA til GSDMB-udtrykkende cancerceller for at lette antitumorimmunitet.
GSDME
Zhang et al. rapporterede også den samme mekanisme for pyroptose-induktion af cytotoksiske lymfocytter, men pegede på GSDME's og GzmB's involvering [33]. Førende til disse fund blev det påvist, at ektopisk udtrykkende muse-GSDME (mGSDME) i murine 4T1E-brystcancerceller indpodet i immunkompetente BALB/c-mus signifikant hæmmede 4T1E-tumorvækst og førte til en stigning i infiltrationen af NK-celler og tumorassocierede makrofager (TAM'er) [33]. Derudover steg NK-celle- og CD8+ TIL-ekspression af GzmB og perforin i disse tumorer, såvel som CD8+ TIL-produktion af IFN- og TNF, når det blev stimuleret af phorbol 12- myristat { {11}}acetat og ionomycin. Omvendt mindskede ekspression af ikke-funktionelle eller ikke-spaltelige versioner af mGSDME i 4T1E-celler disse virkninger signifikant, mens mGSDME knockout i EMT6-tumorer havde de modsatte virkninger. Når 4T1E-tumorceller, der udtrykker forstærket grønt fluorescerende protein (eGFP), blev implanteret i disse mus, blev antallet af eGFP-positive CD8+ TIL'er set at være markant højere, når 4T1E-cellerne også overudtrykte mGSDME. eGFP-positive TIL'er i mGSDME-overudtrykkende tumorer havde også højere perforinekspression og cytokinproduktion sekundært til GFP-farvning; og en fordobling af eGFP-positive TAM'er i disse tumorer sammenlignet med kontroller indikerede kraftigt større tumorcellefagocytose, hvilket kan have hjulpet med at fremme antitumoradaptiv immunitet. For at undersøge sammenhængen mellem GSDME-medieret tumorundertrykkelse og immunrespons, blev NSG-mus, der manglede modne lymfocytter og perforin-deficiente BALB/c-mus, ansat separat af gruppen for at afsløre, at antitumoreffekten af GSDME var både lymfocyt- og perforin- afhængig og impliceret involvering af NK- og CD8+ T-celler. Gennem yderligere undersøgelser blev det vist, at den humane NK-cellelinje YT kan aktivere pyroptose i GSDME-udtrykkende HeLa-celler og spekulerede ud fra eksperimenter med den humane neuroblastom SH-SY5Y-cellelinje, at denne induktion blev opnået gennem GzmB, som ikke kun spalter GSDME ved det samme websted som caspase-3, men indirekte aktiverer caspase-3. Vaccine/udfordringsforsøg indikerede også kraftigt, at pyroptose var en form for ICD, som er i overensstemmelse med den øgede infiltration og forbedrede immuncellefunktion observeret under tidligere eksperimenter med mGSDME-overudtrykkende celler [33].
Disse resultater er i overensstemmelse med dem af Liu et al., som foreslog, at CAR-T-celler kan inducere GSDME-medieret tumorcellepyroptose i B-leukæmiske og solide tumorceller gennem perforin og GzmB-frigivelse [72]. GzmB blev ligeledes vist hurtigt at spalte GSDMB og aktivere caspase-3 i Luc-Raji- og NALM- 6-celler, selvom dets frigivelse og potentiale til at inducere muse B16-melanomcellepyroptose blev foreslået at være afhængig af CAR-T henholdsvis celletumorantigenaffinitet og co-signaleringsdomæner eller dets mængde, når de frigives. Behandling af menneskeafledte makrofager med supernatanterne fra co-dyrkede CD19-CAR-T-celler og cancerceller (NALM-6, Raji eller primære B-leukæmiske celler) foranledigede makrofagaktivering af caspase{{14} }, spaltning af GSDMD og frigivelse af IL-6 og IL-1 . Disse observationer blev dog ikke set, hvis de samdyrkede cancerceller var mangelfulde i GSDME eller makrofagerne i caspase-1, GSDMD eller NLRP3. Det blev også afsløret, at ATP og HMGB1 i de co-dyrkede pyroptotiske supernatanter var henholdsvis tilstrækkelige til at fremme makrofag IL-1 sekretion og IL-6 opregulering. I store træk varslede disse fund dem, der blev set i en leukæmi CAR-T celle-induceret cytokin release syndrome (CRS) musemodel (ved brug af Raji eller NALM-6 celler i alvorlige kombinerede immundefekte beige mus), hvilket indikerede, at CAR-T celleterapi fremkaldte CRS gennem GSDME-faciliteret pyroptose. Denne opfattelse blev yderligere understøttet, da primære B-leukæmiske celler fra patienter før CD19-CAR T-cellebehandling blev analyseret og viste øgede GSDME-niveauer, der er forbundet med mere alvorlig CRS [72].
Bortset fra, er det værd at nævne, at i en separat undersøgelse fremmede behandlingsinduceret pyroptose i melanomceller via GSDME og caspase-3 følgelig HMGB1-frigivelse og var direkte knyttet til infiltrationen af både tumorassocierede T-celler og aktiverede dendritiske celler [73]. Det blev derfor foreslået af gruppen, at DAMP'er, ligesom HMGB1, kan aktivere dendritiske celler, som igen fremkalder T-celleproliferation og modning og bidrager til antitumorimmunresponser [73].

cistanche tubulosa-forbedrer immunsystemet
Udsigter for pyroptose i anticancerterapi
I de senere år har et stigende antal undersøgelser illustreret gennemførligheden og det terapeutiske potentiale ved at udnytte pyroptose til at aktivere antitumorimmunitet gennem forskellige målretnings- og leveringsmetoder (fig. 2). Ved anvendelse af tumorcelle-afledte mikropartikler (TMP), for eksempel, har Gao et al. har leveret methotrexat til cholangiocarcinoma (CCA) celler for at inducere GSDME-medieret pyroptose, hvilket fører til aktivering af patientafledte makrofager og rekruttering af neutrofiler til tumorstedet for lægemiddelstyret tumorødelæggelse [74]. Når dette methotrexat-TMP-leveringssystem blev infunderet i galdevejslumen hos ekstrahepatiske CCA-patienter, blev neutrofilaktivering og opløsning af galdeobstruktion observeret hos 25% af patienterne [74]. GSDME-medieret pyroptose har også vist sig at være foranlediget i melanom gennem en kombination af BRAF- og MEK-hæmmere, hvilket forårsager immuncelleinfiltration/aktivering og melanomregression [73]. I en anden strategi blev metformin, det mest almindelige lægemiddel til behandling af type 2-diabetes, brugt til at hæmme cancercelleproliferation ved indirekte at aktivere pyroptose gennem caspase-3 [75]. Specifikt bidrog metformin til mitokondriel dysfunktion og aktiverede AMPK/SIRT1/NF-KB-vejen, hvilket fremmede Bax-akkumulering og cytokrom c-frigivelse, hvilket igen førte til caspase-3-aktivering og GSDME-spaltning [75]. En række små-molekyle-hæmmere rettet mod KRAS-, EGFR- eller ALK-mutant lungecancer blev også opdaget for at inducere pyroptotisk død gennem caspase-3--medieret spaltning af GSDME efter aktivering af den mitokondrielle iboende apoptose-vej [43]. Gruppens fund antydede, at disse to PCD-veje regulerer hinanden, og at pyroptose kan bruges til at øge effektiviteten af anticancer-målrettede terapier, selvom denne effekt reduceres, når den apoptotiske funktion er intakt [43]. I brystcancerceller udløste behandling med en RIG- 1-agonist den ekstrinsiske apoptose-vej og pyroptose, aktiverede STAT1 og NF-KB og opregulerede lymfocyt-rekrutterende kemokiner [76]. Følgelig blev et fald i brystkræftmetastaser og tumorvækst ledsaget af en stigning i tumorlymfocytter efter RIG-1-aktivering hos mus [76]. Selvom skiftet fra apoptose til pyroptose endnu ikke er fuldt ud klarlagt, viste det sig, at en nyligt syntetiseret NF-KB-hæmmer, 13d, kunne standse cancerceller i G2/M-fasen og fremme dette skifte [77]. Behandling med 13d producerede også en robust antitumoreffekt in vivo, mens den udviste lav toksicitet [77], svarende til L61H10, en anden forbindelse rapporteret at inducere en apoptose-til-pyroptose-omskiftning, også sandsynligvis gennem NF-KB-hæmning [78].
En bemærkelsesværdig hindring i udviklingen af pyroptose-baserede anticancerstrategier er det faktum, at mange kræftformer signifikant nedregulerer deres ekspression af GSDM-proteiner eller udtrykker muterede, ikke-funktionelle former af dem [33]. Heldigvis har dette dilemma fanget interessen hos mange forskere, der er begyndt at udvikle smarte løsninger, som Fan et al., der nærmede sig problemet gennem epigenetisk målretning [79]. Ved at bruge decitabin til at demethylere GSDME i kombination med nanolipo-somer, der bærer kemoterapi-lægemidler, der aktiverer caspase-3, vendte gruppen effektivt GSDME-silencing i tumorceller og inducerede pyroptose. Ud over at undertrykke tumorvækst, metastaser og tilbagefald stimulerede dette regime også immunresponser gennem pyroptose-induceret cytokinfrigivelse [79]. I betragtning af, at 91% af de cancerpatientrelaterede GSDME-mutationer evalueret af Zhang et al. blev set at forårsage tab af funktion [33], men det tyder på, at epigenetisk målretning muligvis ikke er en effektiv metode til at inducere pyroptose hos visse patienter. Den målrettede levering af funktionelle GSDM-proteiner direkte til kræftceller via nanoteknologi [70], kan dog give en pålidelig og effektiv måde at omgå dette dilemma. En anden stor hindring, som næsten alle anticancer-immunterapeutiske strategier står over for, er den dysregulering, der stammer fra det immunsuppressive tumormikromiljø, såsom gennem hæmmende receptorer som PD-1. For at imødegå dette har Lu et al. manipulerede NK92-celler indeholdende en kimærisk costimulatory converting receptor (CAR), der konverterer det hæmmende PD-1-signal til et aktiverende signal, hvilket effektivt forbedrer cellernes antitumoraktivitet mod H1299-lungekræftceller [80]. In vitro dræbte CR NK92-celler hurtigt H1299-celler gennem GSDME-medieret pyroptose og hæmmede in vivo signifikant tumorvækst [80]. Taget sammen med Liu og kollegers observationer af CAR-T-celle-induceret pyroptose [72], ser det ud til, at fremtidig udforskning af CAR-baserede terapier, selvom de er udfordrende, vil være særligt umagen værd. Desuden tyder det spændende og voksende antal rapporter om, at pyroptose-induktion synergerer med PD-1-hæmmere for at gøre 'kolde' tumorer 'varme', at vi kun er begyndt at forstå det kombinatoriske potentiale ved pyroptose (fig. 2) [35 , 70].

Fig. 2 Pyroptose opvarmer anticancer-immunitet. 'Kold tumor': tumorceller skaber et immuntolerant mikromiljø og undgår immundetektering og -dræb ved at rekruttere immunsuppressive celler, øge immunkontrolpunktproteiner, hæmme antigenpræsentation og frigive immunhæmmende faktorer. 'Opvarmende tumor': forskellige strategier bruges til at inducere tumorcellepyroptose og "opvarme" tumorer fra immun-stille tilstande. 'Varm tumor': pyroptotiske tumorceller frigiver pro-inflammatoriske cytokiner og immunogent materiale, der tilskynder til aktivering og rekruttering af immunceller. 'Varm tumor': infiltrerede immunceller genkender og dræber tumorceller, og dette drab kan deltage i en positiv feedback-loop, der forbedrer tumorspecifik immunitet. Tumoreliminering kan øges yderligere gennem kombinatoriske terapeutiske strategier. CAR-T, kimærisk antigenreceptor T-celle; CR-NK, kimærisk costimulerende omdannende receptor naturlig dræbercelle; DC, dendritisk celle; GSDM'er, gastrinproteiner; HMGB1, gruppeboksprotein 1 med høj mobilitet; IFN-, interferon-gamma; IL, interleukin; MDSC'er, myeloid-afledte suppressorceller; MHC, større histokompatibilitetskompleks; NK, naturlig dræbercelle; NP, nanopartikel; PD-L1, programmeret dødsligand 1; PD-1, programmeret celledødsprotein 1; TNF-, tumornekrosefaktor-alfa; Tregs, regulatoriske T-celler
Konklusioner og fremtidsperspektiver
Som en inflammatorisk celledødstilstand spiller pyroptose en vigtig rolle i tumorundertrykkelse ved at sætte antitumorimmunresponser i gang. I nogle tilfælde tyder det på, at pyroptose-induktion alene kan være tilstrækkelig til at hindre tumorvækst, selvom variation i dens effektivitet og associerede bivirkninger (f.eks. CRS i CAR-T-celleterapi) antyder, at dens kliniske anvendelse sandsynligvis vil være mest effektiv, når anvendes i kombination med andre anticancer-modaliteter og skræddersyet til individuelle patienter og kræftformer. En af de største udfordringer, som den terapeutiske anvendelse af pyroptose står over for, synes at være uregelmæssigheden i udtryk og funktion af pyroptose-relaterede komponenter, ikke kun på tværs af forskellige kræftformer, men også inden for dem. Ikke desto mindre giver fremskridt inden for molekylære, genetiske og epigenetiske målretnings-/leveringssystemer, sammen med præcision og personlig medicin, håb om, at vi snart kan besidde de nødvendige værktøjer og viden til at udnytte disse kraftfulde mekanismer som våben mod kræft.
Referencer
1. Wong RS. Apoptose i cancer: fra patogenese til behandling. J Exp Clin Cancer Res. 2011;30(1):1–14.
2. Fang Y, Tian S, Pan Y, Li W, Wang Q, Tang Y, et al. Pyroptose: en ny grænse inden for kræft. Biomed Pharmacother. 2020;121:109595. https://doi.org/10.1016/j. biopha.2019.109595.
3. de Vasconcelos NM, Lamkanfi M. Nylig indsigt om inflammasomer, gastrinporer og pyroptose. Cold Spring Harb Perspect Biol. 2020;12(5): a036392. https://doi.org/10.1101/cshperspect.a036392.
4. Gong Y, Fan Z, Luo G, Yang C, Huang Q, Fan K, et al. Nekroptoses rolle i cancerbiologi og terapi. Mol Cancer. 2019;18(1):1–17.
5. Wang Y, Gao W, Shi X, Ding J, Liu W, He H, et al. Kemoterapi-lægemidler inducerer pyroptose gennem caspase-3-spaltningen af en hjerne. Natur. 2017; 547(7661):99-103. https://doi.org/10.1038/nature22393.
6. Bebber CM, Müller F, Prieto Clemente L, Weber J, von Karstedt S. Ferroptosis in cancer cell biology. Kræft. 2020;12(1):164. https://doi.org/10.3390/ca ncers12010164.
7. Mou Y, Wang J, Wu J, He D, Zhang C, Duan C, et al. Ferroptosis, en ny form for celledød: muligheder og udfordringer i kræft. J Hematol Oncol. 2019;12(1):1–16.
8. Inoue H, Tani K. Multimodal immunogen cancercelledød som følge af anticancer cytotoksiske behandlinger. Celledød er forskellig. 2014; 21(1):39-49. https://doi.org/10.1038/cdd.2013.84.
9. Amarante-Mendes GP, Adjemian S, Branco LM, Zanetti LC, Weinlich R, Bortoluci KR. Mønstergenkendelsesreceptorer og værtscelledøds molekylære maskineri. Front Immunol. 2018;9:2379. https://doi.org/10.3389/ fimmu.2018.02379.
10. Tang R, Xu J, Zhang B, Liu J, Liang C, Hua J, et al. Ferroptose, nekroptose og pyroptose i anticancer immunitet. J Hematol Oncol. 2020;13(1):1–18.
11. Monack DM, Raupach B, Hromockyj AE, Falkow S. Salmonella typhimurium-invasion inducerer apoptose i inficerede makrofager. Proc Natl Acad Sci. 1996;93(18):9833-8. https://doi.org/10.1073/pnas.93.18.9833.
12. Zychlinsky A, Prevost MC, Sansonetti PJ. Shigella flexneri inducerer apoptose i inficerede makrofager. Natur. 1992;358(6382):167-9. https://doi.org/10.1 038/358167a0.
13. Hilbi H, Moss JE, Hersh D, Chen Y, Arondel J, Banerjee S, et al. Shigella-induceret apoptose er afhængig af caspase-1, som binder til IpaB. J Biol Chem. 1998;273(49):32895-900. https://doi.org/10.1074/jbc.273.49.32895. 14. Fink SL, Cookson BT. Caspase-1-afhængig poredannelse under pyroptose fører til osmotisk lysis af inficerede værtsmakrofager. Cellemikrobiol. 2006;8(11):1812-25. https://doi.org/10.1111/j.1462-5822.2006. 00751.x.
15. Wu C, Lu W, Zhang Y, Zhang G, Shi X, Hisada Y, et al. Inflammasomaktivering udløser blodkoagulering og værtsdød gennem pyroptose. Immunitet. 2019;50(6):1401-11. e1404.
16. Zhaolin Z, Guohua L, Shiyuan W, Zuo W. Rolle af pyroptosis i hjerte-kar-sygdomme. Cell Prolif. 2019;52(2):e12563. https://doi.org/10.1111/ cpr.12563.
17. Voet S, Srinivasan S, Lamkanfi M, van Loo G. Inflammasomer i neuroinflammatoriske og neurodegenerative sygdomme. EMBO Mol Med. 2019; 11(6):e10248.
18. Doitsh G, Galloway NL, Geng X, Yang Z, Monroe KM, Zepeda O, et al. Celledød som følge af pyroptose driver udtømning af CD4 T-celler ved HIV-1-infektion. Natur. 2014;505(7484):509–14. https://doi.org/10.1038/nature12940.
19. Qiu Z, Lei S, Zhao B, Wu Y, Su W, Liu M, et al. NLRP3-inflammasomaktiveringsmedieret pyroptose forværrer myokardieiskæmi/reperfusionsskade hos diabetiske rotter. Oxid Med Cell Longev. 2017;2017.
20. Kuang S, Zheng J, Yang H, Li S, Duan S, Shen Y, et al. Strukturindsigt i GSDMD afslører grundlaget for GSDMD-autoinhibering i cellepyroptose. Proc Natl Acad Sci. 2017;114(40):10642–7. https://doi.org/10.1073/pnas.17081 94114.
21. Guey B, Bodnar M, Manié SN, Tardivel A, Petrilli V. Caspase-1-autoproteolyse er forskelligt påkrævet for NLRP1b- og NLRP3-inflammasomfunktion. Proc Natl Acad Sci. 2014;111(48):17254–9. https://doi.org/10.1073/pnas.141 5756111.
22. Shi J, Zhao Y, Wang Y, Gao W, Ding J, Li P, et al. Inflammatoriske caspaser er medfødte immunreceptorer for intracellulær LPS. Natur. 2014;514(7521):187– 92. https://doi.org/10.1038/nature13683.
23. Nyström S, Antoine DJ, Lundbäck P, Lock JG, Nita AF, Högstrand K, et al. TLR-aktivering regulerer skadesassocierede molekylære mønsterisoformer frigivet under pyroptose. EMBO J. 2013;32(1):86–99. https://doi.org/10.1038/ emboj.2012.328.
24. Wang K, Sun Q, Zhong X, Zeng M, Zeng H, Shi X, et al. Strukturel mekanisme til GSDMD-målretning af autobehandlede caspaser i pyroptose. Celle. 2020;180(5):941-55. e920.
25. Kayagaki N, Warming S, Lamkanfi M, Walle LV, Louie S, Dong J, et al. Ikke-kanonisk inflammasomaktivering retter sig mod caspase-11. Natur. 2011; 479(7371):117-21. https://doi.org/10.1038/nature10558.
26. Kayagaki N, Stowe IB, Lee BL, O'Rourke K, Anderson K, Warming S, et al. Caspase-11 spalter gasdermin D til ikke-kanonisk inflammasomsignalering. Natur. 2015;526(7575):666-71. https://doi.org/10.1038/nature1 5541.
27. Gao J, Qiu X, Xi G, Liu H, Zhang F, Lv T, et al. Nedregulering af GSDMD dæmper tumorproliferation via den iboende mitokondrielle apoptotiske vej og inhibering af EGFR/Akt-signalering og forudsiger en god prognose ved ikke-småcellet lungekræft. Oncol Rep. 2018;40(4):1971–84. https://doi.org/10.3892/or.2018.6634.
28. Tsuchiya K, Nakajima S, Hosojima S, Nguyen DT, Hattori T, Le TM, et al. Caspase-1 initierer apoptose i fravær af gasdermin D. Nat Commun. 2019;10(1):1–19.
29. Lee BL, Mirrashidi KM, Stowe IB, Kummerfeld SK, Watanabe C, Haley B, et al. ASC- og caspase--8-afhængig apoptotisk vej afviger fra NLRC4-inflammasomet i makrofager. Sci Rep. 2018;8(1):1–12.
30. Chen KW, Demarco B, Heilig R, Shkarina K, Boettcher A, Farady CJ, et al. Ekstrinsisk og indre apoptose aktiverer pannexin-1 for at drive NLRP 3-inflammasomsamling. EMBO J. 2019;38(10):e101638.
31. Demarco B, Grayczyk JP, Bjanes E, Le Roy D, Tonnus W, Assenmacher CA, et al. Caspase-8-8-afhængig gasdermin D-spaltning fremmer antimikrobielt forsvar, men giver følsomhed over for TNF-induceret dødelighed. Sci Adv. 2020; 6(47):eabc3465.
32. Aizawa E, Karasawa T, Watanabe S, Komada T, Kimura H, Kamata R, et al. GSDME-afhængig ufuldstændig pyroptose tillader selektiv IL-1-frigivelse under caspase-1-hæmning. iScience. 2020;23(5):101070.
33. Zhang Z, Zhang Y, Xia S, Kong Q, Li S, Liu X, et al. Gasdermin E undertrykker tumorvækst ved at aktivere antitumorimmunitet. Natur. 2020;579(7799): 415-20. https://doi.org/10.1038/s41586-020-2071-9.
34. Li L, Li Y, Bai Y. GSDMB's rolle i pyroptose og kræft. Cancer Manag Res. 2020;12:3033-43. https://doi.org/10.2147/CMAR.S246948.
35. Zhou Z, He H, Wang K, Shi X, Wang Y, Su Y, et al. Granzym A fra cytotoksiske lymfocytter spalter GSDMB for at udløse pyroptose i målceller. Videnskab. 2020;368(6494).
36. Hou J, Zhao R, Xia W, Chang CW, You Y, Hsu JM, et al. PD-L1-medieret gasdermin C-ekspression skifter apoptose til pyroptose i cancerceller og letter tumornekrose. Nat Cell Biol. 2020;22(10):1264-75. https:// doi.org/10.1038/s41556-020-0575-z.
37. Tang L, Lu C, Zheng G, Burgering BM. Ny indsigt i hjernens rolle i infektioner og inflammatoriske sygdomme. Clin Transl Immunol. 2020;9(10):e1186.
38. Wang M, Jiang S, Zhang Y, Li P, Wang K. De mangefacetterede roller af pyroptotisk celledødsveje i cancer. Kræft. 2019;11(9):1313. https:// doi.org/10.3390/cancers11091313.
39. Tan G, Huang C, Chen J, Zhi F. HMGB1 frigivet fra GSDME-medierede pyroptotiske epitelceller deltager i tumorgenesen af colitis-associeret kolorektal cancer gennem ERK1/2-vejen. J Hematol Oncol. 2020;13(1):1–11.
40. Vakkila J, Lotze MT. Inflammation og nekrose fremmer tumorvækst. Nat Rev Immunol. 2004;4(8):641-8. https://doi.org/10.1038/nri1415.
41. Wang F, Liu W, Ning J, Wang J, Lang Y, Jin X, et al. Simvastatin undertrykker spredning og migration i ikke-småcellet lungekræft via pyroptose. Int J Biol Sci. 2018;14(4):406–17. https://doi.org/10.7150/ijbs.23542.
42. Cc Z, Cg L, Wang Yf, Xu Lh, He Xh, Qz Z, et al. Kemoterapeutisk paclitaxel og cisplatin inducerer differentielt pyroptose i A549-lungecancerceller via caspase-3/GSDME-aktivering. Apoptose. 2019;24(3):312–25.
43. Lu H, Zhang S, Wu J, Chen M, Cai MC, Fu Y, et al. Molekylær målrettede terapier fremkalder samtidig apoptotisk og GSDME-afhængig pyroptotisk tumorcelledød. Clin Cancer Res. 2018;24(23):6066–77. https://doi.org/10.11 58/1078-0432.CCR-18-1478.
44. Zhang Y, Yang H, Sun M, He T, Liu Y, Yang X, et al. Alpinumisoflavon undertrykker hepatocellulær carcinom cellevækst og metastase via NLRP3 inflammasom-medieret pyroptose. Pharmacol Rep. 2020;72(5):1370-82. https://doi.org/10.1007/s43440-020-00064-8.
45. Chu Q, Jiang Y, Zhang W, Xu C, Du W, Tuguzbaeva G, et al. Pyroptose er involveret i patogenesen af humant hepatocellulært karcinom. Oncotarget. 2016;7(51):84658-65. https://doi.org/10.18632/oncotarget.12384.
46. Hergueta-Redondo M, Sarrió D, Molina-Crespo Á, Megias D, Mota A, RojoSebastian A, et al. Gasdermin-B fremmer invasion og metastaser i brystkræftceller. PLoS One. 2014;9(3):e90099. https://doi.org/10.1371/journal. pone.0090099.
47. Kim MS, Lebron C, Nagpal JK, Chae YK, Chang X, Huang Y, et al. Methylering af DFNA5 øger risikoen for lymfeknudemetastaser ved human brystkræft. Biochem Biophys Res Commun. 2008;370(1):38–43. https://doi.org/1 0.1016/j.bbrc.2008.03.026.
48. Sun Y, Guo Y. Ekspression af Caspase-1 i brystkræftvæv og dets virkninger på celleproliferation, apoptose og invasion. Oncol Lett. 2018;15(5): 6431–5. https://doi.org/10.3892/ol.2018.8176.
49. Wei Y, Huang H, Qiu Z, Li H, Tan J, Ren G, et al. NLRP1-overekspression er korreleret med tumorigenesen og spredningen af humane brysttumorer. Biomed Res Int. 2017;2017:1–9. https://doi.org/10.1155/2017/4938473.
50. Miguchi M, Hinoi T, Shimomura M, Adachi T, Saito Y, Niitsu H, et al. Gasdermin C opreguleres ved inaktivering af transformerende vækstfaktorreceptor type II i nærvær af muteret Apc, hvilket fremmer proliferation af kolorektal cancer. PLoS One. 2016;11(11):e0166422. https://doi.org/10.13 71/journal.pone.0166422.
51. Kim M, Chang X, Yamashita K, Nagpal J, Baek J, Wu G, et al. Afvigende promotormethylering og tumorundertrykkende aktivitet af DFNA5-genet i kolorektalt karcinom. Onkogen. 2008;27(25):3624-34. https://doi.org/10.103 8/sj.onc.1211021. 52. Dihlmann S, Tao S, Echterdiek F, Herpel E, Jansen L, Chang-Claude J, et al. Manglende fravær i melanom 2 (AIM2) ekspression i tumorceller er tæt forbundet med dårlig overlevelse hos kolorektal cancerpatienter. Int J Kræft. 2014;135(10):2387–96. https://doi.org/10.1002/ijc.28891.
53. Hu B, Elinav E, Huber S, Booth CJ, Strowig T, Jin C, et al. Inflammationsinduceret tumorgenese i tyktarmen reguleres af caspase-1 og NLRC4. Proc Natl Acad Sci. 2010;107(50):21635-40. https://doi.org/10.1073/pnas.101 6814108.
54. Chen C, Wang B, Sun J, Na H, Chen Z, Zhu Z, et al. DAC kan genoprette ekspression af NALP1 for at undertrykke tumorvækst i tyktarmskræft. Celledød Dis. 2015;6(1):e1602–2. https://doi.org/10.1038/cddis.2014.532.
55. Saeki N, Kim D, Usui T, Aoyagi K, Tatsuta T, Aoki K, et al. GASDERMIN, der ofte undertrykkes i mavekræft, er et mål for LMO1 i TGF- --afhængig apoptotisk signalering. Onkogen. 2007;26(45):6488-98. https://doi. org/10.1038/sj.onc.1210475.
56. Saeki N, Usui T, Aoyagi K, Kim DH, Sato M, Mabuchi T, et al. Karakteristisk ekspression og funktion af fire GSDM-familiegener (GSDMA-D) i normalt og malignt øvre mave-tarm-epitel. Gener Kromosomer Kræft. 2009;48(3):261-71. https://doi.org/10.1002/gcc.20636.
57. Wang WJ, Chen D, Jiang MZ, Xu B, Li XW, Chu Y, et al. Nedregulering af gastrin D fremmer proliferation af mavekræft ved at regulere cellecyklus-relaterede proteiner. J Dig Dis. 2018;19(2):74–83. https://doi.org/10.1111/1751-2 980.12576.
58. Akino K, Toyota M, Suzuki H, Imai T, Maruyama R, Kusano M, et al. Identifikation af DFNA5 som et mål for epigenetisk inaktivering i mavekræft. Cancer Sci. 2007;98(1):88-95. https://doi.org/10.1111/j.1349-7006.2 006.00351.x.
59. Croes L, Fransen E, Hylebos M, Buys K, Hermans C, Broeckx G, et al. Bestemmelse af de potentielle tumor-undertrykkende virkninger af GSDME i en kemisk induceret og genetisk modificeret tarmkræft musemodel. Kræft. 2019;11(8):1214.
60. Jiang Z, Yao L, Ma H, Xu P, Li Z, Guo M, et al. miRNA-214 hæmmer cellulær proliferation og migration i gliomceller rettet mod caspase 1 involveret i pyroptose. Oncol Res. 2017;25(6):1009–19. https://doi.org/10.3727/09650401 6X14813859905646.
61. Ma X, Guo P, Qiu Y, Mu K, Zhu L, Zhao W, et al. Tab af AIM2-ekspression fremmer hepatokarcinomprogression gennem aktivering af mTOR-S6K1-vejen. Oncotarget. 2016;7(24):36185-97. https://doi.org/10.18632/oncota rget.9154.
62. Zhai Z, Samson JM, Yamauchi T, Vaddi PK, Matsumoto Y, Dinarello CA, et al. Inflammasomsensor NLRP1 giver erhvervet lægemiddelresistens over for temozolomid i humant melanom. Kræft. 2020;12(9):2518. https://doi. org/10.3390/cancers12092518.
63. Zhai Z, Liu W, Kaur M, Luo Y, Domenico J, Samson JM, et al. NLRP1 fremmer tumorvækst ved at øge inflammasomaktivering og undertrykke apoptose ved metastatisk melanom. Onkogen. 2017;36(27): 3820–30. https://doi.org/10.1038/onc.2017.26.
64. Winter RN, Kramer A, Borkowski A, Kyprianou N. Tab af caspase-1 og caspase-3 proteinekspression i human prostatacancer. Cancer Res. 2001; 61(3):1227-32.
65. Wang M, Chen X, Zhang Y. Biologiske funktioner af Gasdermins i kræft: fra molekylære mekanismer til terapeutisk potentiale. Front Cell Dev Biol. 2021;9:189.
66. Yu P, Zhang X, Liu N, Tang L, Peng C, Chen X. Pyroptose: mekanismer og sygdomme. Signal Transduct Tar. 2021;6(1):1–21.
67. Ibrahim J. Op de Beeck K, Fransen E, Croes L, Beyens M, Suls A, Vanden Berghe W, Peeters M, Van camp G. Methyleringsanalyse af Gasdermin E viser store løfter som en biomarkør for kolorektal cancer. Cancer Med. 2019;8(5):2133–45. https://doi.org/10.1002/cam4.2103.
68. Tan Y, Chen Q, Li X, Zeng Z, Xiong W, Li G, et al. Pyroptosis: et nyt paradigme for celledød til bekæmpelse af kræft. J Exp Clin Cancer Res. 2021;40(1):1–15.
69. Fucikova J, Kepp O, Kasikova L, Petroni G, Yamazaki T, Liu P, et al. Påvisning af immunogen celledød og dens relevans for cancerterapi. Cell Death Dis 2020;11(11):1–13, 1013. https://doi.org/10.1038/s41419-020-03221-2.
70. Wang Q, Wang Y, Ding J, Wang C, Zhou X, Gao W, et al. Et bioortogonalt system afslører antitumorimmunfunktionen af pyroptose. Natur. 2020; 579(7799):421-6. https://doi.org/10.1038/s41586-020-2079-1.
71. Xi G, Gao J, Wan B, Zhan P, Xu W, Lv T, et al. GSDMD er påkrævet for effektor CD8+ T-celleresponser på lungecancerceller. Int Immunopharmacol. 2019;74: 105713. https://doi.org/10.1016/j.intimp.2019.105713.
72. Liu Y, Fang Y, Chen X, Wang Z, Liang X, Zhang T, et al. Gasdermin E – E-medieret målcellepyroptose af CAR T-celler udløser cytokinfrigivelsessyndrom. Sci Immunol. 2020;5(43).
73. Erkes DA, Cai W, Sanchez IM, Purwin TJ, Rogers C, Field CO, et al. Mutante BRAF- og MEK-hæmmere regulerer tumorimmunmikromiljøet via pyroptose. Cancer Discover. 2020;10(2):254–69. https://doi.org/10.1158/2159- 8290.CD-19-0672.
74. Gao Y, Zhang H, Zhou N, Xu P, Wang J, Gao Y, et al. Methotrexat-belastede tumorcelle-afledte mikrovesikler kan lindre biliær obstruktion hos patienter med ekstrahepatisk kolangiocarcinom. Nat Biomed Eng. 2020;4(7):743–53. https://doi.org/10.1038/s41551-020-0583-0.
75. Zheng Z, Bian Y, Zhang Y, Ren G, Li G. Metformin aktiverer AMPK/SIRT1/NF-KB-vejen og inducerer mitokondriel dysfunktion til at drive caspase3/GSDME-medieret cancercellepyroptose. Cellecyklus. 2020;19(10):1089-104. https://doi.org/10.1080/15384101.2020.1743911.
76. Elion DL, Jacobson ME, Hicks DJ, Rahman B, Sanchez V, Gonzales-Ericsson PI, et al. Terapeutisk aktiv RIG-I-agonist inducerer immunogen tumorcelledrab i brystkræft. Cancer Res. 2018;78(21):6183–95. https://doi.org/1 0.1158/0008-5472.CAN-18-0730.
77. Chen L, Li Q, Zheng Z, Xie J, Lin X, Jiang C, et al. Design og optimer Nsubstituted EF 24 som en effektiv NF-KB-hæmmer med lav toksicitet til lungekræftbehandling via apoptose-til-pyroptose-omskifter. Chem Biol Drug Des. 2019;94(1):1368-77. https://doi.org/10.1111/cbdd.13514.
78. Chen L, Weng B, Li H, Wang H, Li Q, Wei X, et al. Et thiopyranderivat med lav murin toksicitet med terapeutisk potentiale på lungekræft, der virker gennem en NF-KB-medieret apoptose-til-pyroptose-omskifter. Apoptose. 2019; 24(1):74–82. https://doi.org/10.1007/s10495-018-1499-y.
79. Fan JX, Deng RH, Wang H, Liu XH, Wang XN, Qin R, et al. Epigenetik-baseret tumorcelle-pyroptose til at øge den immunologiske effekt af kemoterapeutiske nanobærere. Nano Lett. 2019;19(11):8049–58. https://doi. org/10.1021/acs.nanolett.9b03245.
80. Lu C, Guo C, Chen H, Zhang H, Zhi L, Lv T, et al. En ny kimærisk PD1- NKG2D-41BB-receptor øger antitumoraktiviteten af NK92-celler mod humane lungecancer H1299-celler ved at udløse pyroptose. Mol Immunol. 2020;122:200–6. https://doi.org/10.1016/j.molimm.2020.04.016.