

Ekspression af immunoglobulin G i humane proksimale tubulære epitelceller
Mar 18, 2022
Kontakt: Audrey Hu Whatsapp/hp: 0086 13880143964 E-mail:audrey.hu@wecistanche.com
ZHENLING DENG et al
Abstrakt. Proksimaltrørformetepitelceller (PTEC'er) har medfødte immunkarakteristika og producerer proinflammatoriske faktorer, kemokiner og komplementkomponenter, der driver epitel-mesenkymal overgang (EMT). Vores tidligere undersøgelser afslørede, at humane mesangiale celler og podocytter var i stand til at syntetisere og udskille henholdsvis immunglobulin (Ig)A og IgG. Formålet med denne undersøgelse var at evaluere ekspressionen af Ig'er i PTEC'er. For det første blev IgG påvist i cytoplasmaet, cellemembranen og lumen afPTEC'eri den normale nyrebark vedimmunhistokemi. For det andet blev Ig-gentransskription og V(D)J-rekombination påvist i enkelte PTEC'er ved indlejret PCR og Sanger-sekventering. For det tredje blev Ig, Igκ og Igλ tydeligt påvist i en udødeliggjort PTEC-linje (HK-2) ved immunfarvning og western blotting, hvor RP215 (et antistof, der overvejende binder til ikke-B-celle-afledt IgG) blev brugt. Derudover blev Ig-, Igκ- og Igλ-gentranskripter, konservativ V(D)J-rekombination i den variable Ig-region, rekombinationsaktiverende gen 1/2 og aktiveringsinduceret cytidin-deaminase alle påvist i HK-2-celler. Disse data antydede, at PTEC'er kan udtrykke IgG på samme måde som B-celler. Ydermere blev IgG-ekspression opreguleret af TGF-1 og kan være involveret i EMT.
Nøgleord:proksimaltrørformetepitelceller, enkeltcelle, HK-2, IgG, epitel-mesenkymal overgang

Cistanche tubulosa forebygger nyresygdom, klik her for at få prøven
Introduktion
Proksimaltrørformetepitelceller (PTEC'er) er den mest udbredte celletype inyreog har en vigtig rolle i nyrereparation og/eller progression af kroniske nyresygdomme. PTEC'er udøver immunologiske funktioner ved at udtrykke flere Toll-lignende receptorer (TLR'er), såsom TLR 1, 2, 3, 4 og 9 (1,2), og molekyler forbundet med antigen-præsenterende cellefunktion, herunder MHCII, CD74, CD80 og CD86 (3). Disse medfødte immunkarakteristika ved PTEC'er gør dem i stand til at fungere som immunrespondere på en bred vifte af stimuli med den deraf følgende produktion og frigivelse af bioaktive mediatorer, herunder proinflammatoriske cytokiner, kemokiner og komplementkomponenter, som driver interstitiel inflammation og fibrose (4). PTEC'er udtrykker også neonatale Fc-receptorer og bevarer kapaciteten til specifik pH-afhængig binding og transcytose af immunglobulin (Ig)G (5). Så vidt vi ved, er det dog stadig ukendt, om PTEC'er udtrykker Igs.
Det var tidligere antaget, at Ig'er udelukkende produceres af modne B-celler og plasmaceller, og at Ig'er fungerer som antistoffer til at genkende og neutralisere forskellige patogener. Imidlertid er denne teori blevet udfordret i de seneste årtier, da stigende beviser har rapporteret, at Ig'er, herunder IgA, IgG og IgM, kan produceres og udskilles af ikke-B-celler, såsom humane epitelkræftceller (6,7) og normale ikke-B-celler (8,9) såvel som på immunprivilegerede steder, såsom øjne (10), centrale neuroner (11,12), placenta (13) og testikler og bitestikler (14)
I lighed med B-celle-afledte Ig'er (B-Ig'er), er ikke-B-Ig'er også produkterne af Ig-gentransskription og omarrangering og viser klassiske V(D)J-rekombinationsmønstre med nukleotidadditioner ved overgangene og somatiske hypermutationer(7, 11,14). I modsætning til B-Ig'er viser ikke-B-Ig'er begrænsede V(D)J-rekombinationsmønstre og mindre diversitet (7). Funktionelt udøver ikke-B-Ig'erne ikke kun naturlig antistofaktivitet i huden og slimhinden (8), men kan også fungere som vækstfaktorer for at fremme celleproliferation og adhæsion og kan øge initieringen og metastasen af cancer ved at binde sig til integriner ( 15-17). For eksempel udfører RP215-genkendt cancer-IgG sin onkogene funktion ved at interagere med integrin-6 4-komplekset og aktivere FAK- og Src-vejene (15).
Vores tidligere undersøgelse viste, at mesangiale celler (18) og podocytter (19) kan syntetisere og udskille IgA og IgG og deltage i cellevækst og celleadhæsion in vitro. Denne undersøgelse havde til formål at evaluere ekspressionsniveauerne af Ig'er i PTEC'er og undersøge dets potentielle rolle i epitel-mesenkymal overgang (EMT).
Virkninger af cistanche: gavner nyre
Materialer og metoder
Cellekultur og behandling.En udødeliggjort PTEC-linje HK-2 blev købt fra American Type Culture Collection. HK‑2-celler blev dyrket i DMEM/F12 suppleret med 100 U/ml penicillin, 0,1 mg/ml streptomycin (alle Gibco; Thermo Fisher Scientific, Inc.) og 10 procent føtalt bovint serum (FBS; australsk oprindelse; Biological Industries USA, Inc.) ved 37˚C i en atmosfære, der indeholder 95 procent luft og 5 procent CO2. For at undgå interferens af Ig i FBS blev mediet erstattet med et serumfrit medium 24-48 timer før cellehøst. HK‑2-celler blev behandlet med forskellige koncentrationer (2, 5 og 10 ng/ml) af TGF‑1 (Sigma‑Aldrich; Merck KGaA).
Enkelt PTEC-isolering og cDNA-syntese.En human nyreprøve af makroskopisk normalt kortikalt væv blev opnået fra en patient (mand, 31 år gammel), der undergik nefrektomi som et resultat af nyrecarcinom uden tydelig nyreinsfunktion. En enkeltcellesuspension blev fremstillet ved at fordøje nyrebarken med 1 mg/ml collagenase I (Sigma-Aldrich; Merck KGaA) ved 37˚C i 20 min. PTEC'er blev sorteret ved hjælp af phycoerythrin (PE)-konjugeret anti-CD10 (kat. nr. 312203) og allophycocyanin (APC)-konjugeret anti-CD13 (kat. nr. 301705; begge BioLegend, Inc.) ved sortering af fluorescensceller (fluorescenscelle). BD FACSAria II Special Order System) som tidligere beskrevet (20). De tilsvarende isotypekontrolantistoffer (kat. nr. 400111 og 400119; begge BioLegend, Inc.) blev brugt til at udelukke ikke-specifik farvning. Dobbelt positivt mærkede levende celler blev isoleret som PTEC'er. En enkelt PTEC blev manuelt udvalgt under et inverteret lysmikroskop ved hjælp af en kapillarpipette og blev derefter overført til et 0,2 ml tyndvægget PCR-rør indeholdende lysisbuffer (21). Enkelt PTEC RNA-ekstraktion og cDNA-syntese blev udført ifølge tidligere beskrevne metoder(21). I alt fem enkelte PTEC'er blev brugt til at påvise Ig-gentransskription og omlejring.
PCR-amplifikation.Total RNA blev ekstraheret fra HK-2-celler, mononukleære celler fra perifert blod [PBMC'er, isoleret fra en 31-årig kvindelig rask donor ved hjælp af Ficoll (kat. nr. 7111011; Dakewe Biotech., Ltd.) ] og nyrebark (fra den samme patient, der blev brugt i enkelt PTEC-isolation) under anvendelse af TRIzol®-reagens (Invitrogen; Thermo Fisher Scientific, Inc.), og RNA-koncentrationen blev vurderet ved hjælp af et NanoDrop-spektrofotometer (NanoDrop; Thermo Fisher Scientific, Inc.) . Efterfølgende blev 2 µg total RNA revers-transkriberet til cDNA ved hjælp af RevertAid First Strand cDNA Synthesis kit (kat. nr. K1622; Thermo Fisher Scientific, Inc.). PCR blev udført ved hjælp af primere rettet mod de konstante regioner af Ig , Igκ, Igλ og aktiveringsinduceret cytidindeaminase (AID). Nested PCR blev udført for at amplificere den variable region af Ig, low-density lipoprotein receptor-relateret protein 2 (LRP2) og rekombinationsaktiverende gen (RAG)1 og RAG2. PCR-produkterne blev separeret ved elektroforese på en 1,0 procent agarosegel og blev visualiseret ved anvendelse af GelRed (kat. nr. 41003; Biotium, Inc.). Primerne af AID, RAG1/2 og de konstante regioner af Ig, Igκ, Igλ anvendt i denne undersøgelse henviser til primere anvendt af Jing et al (19). Primerne af den variable Ig-region refererer til primere anvendt af van Dongen et al (22). De andre primere anvendt til PCR er anført i tabel SI. Termocyklusbetingelserne er anført i tabel SII.
Sanger-sekventering og analyser af sekventeringsdata.PCR-produkter af den variable Ig-region opnået fra enkelte PTEC'er, HK-2-celler og PBMC'er blev henholdsvis klonet ind i et pGEM-T Easy Vector System I (kat. nr. A1360; Promega Corporation), som blev transformeret ind i TOP10-kompetente celler (CB104; Tiangen Biotech Co., Ltd.). Kort fortalt blev 5 µl ligeringsprodukter tilsat til 30 µl TOP10-kompetente celler, inkuberet på is i 30 minutter, varmechok ved 42˚C i 90 sekunder og inkuberet på is i 5 minutter. Derefter blev 500 µl LB tilsat og efterladt til at stå ved 37 ˚C i 40 minutter før inokulering af en del af bakterievæsken på petriskåle overtrukket med 0,1 mmol/l IPTG og 20 µg/ml X-Gal. Skåle blev vendt ved 37˚C natten over. I alt blev 5-16 hvide kolonier pr. prøve valgt tilfældigt og sekventeret ved hjælp af en ABI 3730XL Genetic Analyzer (Applied Biosystems; Thermo Fisher Scientific, Inc.). De omarrangerede V(D)J-sekvenser blev sammenlignet med dem i det grundlæggende lokale alignment-søgeværktøj (https://www.ncbi.nlm.nih.gov/igblast/) for at identificere de bedst matchende kimlinjegensegmenter og junctions efter primertrimning .
Western blot analyse.HK-2-celler blev lyseret i TSD-lysebuffer [1 procent SDS, 50 mM Tris-HCl (pH 7,5), 50 mM DTT] indeholdende en proteaseinhibitorcocktail (Applygen Technologies Inc.), sonikeret ved isvand i 1 minut ( arbejder 5 sekunder og hviler 15 sekunder; 3 gange) og lyseres i 30 minutter ved stuetemperatur. Efter centrifugering ved 12,000 xgi 10 minutter ved 4˚C, blev proteinkoncentrationen af cellelysatet bestemt ved hjælp af et BCA-kit (Applygen Technologies Inc.). Efterfølgende blev 5X reducerende belastningsbuffer tilsat til lysatet, kogt ved 100˚C i 10 minutter, og prøverne blev straks brugt til western blot-analyse. Serum, anvendt som en positiv kontrol for Ig, blev isoleret fra en rask donor (den samme donor som anvendt i PBMC'er) ved centrifugering ved 2.103 xgi 10 minutter ved stuetemperatur.

Virkninger af cistanche: gavner nyre
Western blotting blev udført ifølge standardprocedurer. Kort fortalt blev 3{{40}} µg proteiner adskilt ved SDS-PAGE på 10 procent geler og blev overført til en nitrocellulosemembran. Efterfølgende blev membranen blokeret i 5 procent skummetmælk ved stuetemperatur i 1 time og blev inkuberet med primære antistoffer ved 4˚C natten over, inklusive kanin anti-humant Ig (kat.nr. ab109489; 1:1,{{8} }), kanin anti-human Ig 4 (kat. nr. ab109493; 1:1,000), anti-Igκ (kat. nr. ab124727; 1:10,000), anti-Igκ Igλ (kat.nr. ab124719; 1:20,000), kanin-anti-human-aktin (kat.nr. ab8227; 1:2,000) (alle fra Abcam) og RP215 monoklonalt antistof (mAb) (doneret af professor Xiaoyan Qiu, Peking University, Beijing, Kina; 1:1,000), som specifikt identificerede en kulhydrat-associeret epitop på ikke-B-Ig. Membranen blev derefter inkuberet med gede-anti-kanin (kat. nr. 926-32211) eller anti-mus (kat. nr. 926-32210) IgG-IRDyeTM680CW sekundære antistoffer (begge 1:10,{{37}; LI-COR Biosciences) ved stuetemperatur i 1 time. Signalet blev detekteret ved hjælp af Odyssey Imaging-systemet og Odyssey V3.0-softwaren (begge LI-COR Biosciences). ImageJ-software (version 1.8.0; National Institutes of Health) blev brugt til semi-kvantificering.
IgG-oprensning og massespektrometri.Efter at HK‑2-celler var blevet dyrket i DMEM/F12 uden FBS i 48 timer, blev kultursupernatanten opsamlet efter centrifugering ved 2,103 xg i 10 minutter ved 4˚C. Cellesupernatanten blev oprenset ved affinitetschromatografi under anvendelse af protein G Sepharose i henhold til producentens instruktioner (kat. nr. 17-0618-02; Thermo Fisher Scientific, Inc.). Eluenten blev ultrafiltreret for at erstatte elueringsbufferen (0,1 M glycin; pH 2,4) med PBS. De oprensede proteiner blev separeret ved SDS-PAGE på 10 procent geler, detekteret ved western blotting og yderligere analyseret ved massespektrometri udført af Beijing Protein Innovation Co., Ltd.
Immunfluorescens.HK-2-celler blev dyrket på dækglas, som blev fikseret i kold ufortyndet acetone i 5 minutter ved stuetemperatur. Efterfølgende blev objektglassene vasket to gange i PBS og blokeret med 5 procent FBS/PBS ved stuetemperatur i 20 minutter, hvorefter de blev inkuberet med primære antistoffer ved 4˚C natten over. Antistofferne var de samme som dem, der blev brugt i western blotting: Kanin anti-human Ig (1:150), anti-human Igκ (1:250), anti-human Igλ (1:250) og RP215 mAb (1:200) ); PBS blev anvendt som en negativ kontrol. Efter vask i PBS blev objektglassene inkuberet med fluorescein-isothiocyanat-mærket gede-anti-kanin (kat. nr. A11008) eller gede-anti-mus (kat. nr. A11001) IgG-antistoffer (1:1,000; Invitrogen; Thermo Fisher Scientific, Inc.) ved stuetemperatur i 1 time. Kerner blev farvet med DAPI. Billeder blev optaget under et Leica DFC300 FX fluorescensmikroskop (Leica Microsystems GmbH).
Immunhistokemisk farvning.Paracancerøse nyrebark blev indsamlet fra fire mandlige patienter (alder, 38-49 år) med nyrecarcinom. Normale paracancerøse nyrebarker efter nefrektomi blev fikseret med 10 procent formalin i 48 timer ved stuetemperatur og derefter indlejret i paraffin. Paraffinindlejrede humane nyreprøver blev skåret i 3-µm sektioner og afparaffiniseret og rehydreret gennem en række graderede ethanolkoncentrationer. Antigenudvinding blev udført ved kogning i 0.05 M Tris-EDTA (pH 9,0) i en trykkoger i 3 min. Sektionerne blev derefter inkuberet med 3 procent H2O2-opløsning i 10 minutter ved stuetemperatur for at eliminere endogen peroxidase og inkuberet med normalt gedeserum (kat.nr. ZLI-9022, ZSGB-BIO, Kina) i 30 minutter ved stuetemperatur for at blokere uspecifik antistofbindingssteder ved stuetemperatur. Efterfølgende blev der udført indirekte immunhistokemisk farvning med primære antistoffer ved 4˚C natten over, inklusive RP215 mAb (1:200; 5 µg/ml), kanin anti-humant Ig (1:2,000), anti-humant Igκ (1:1,000), anti-humant Igλ (1:1,000) (de samme antistoffer som brugt i western blotting). Sektioner uden primære antistoffer blev anvendt som negative kontroller. Objektglassene blev derefter inkuberet med ufortyndede peberrodsperoxidase-mærkede sekundære antistoffer (kat. nr. PV-6001 og PV-6002; begge OriGene Technologies, Inc.) ved stuetemperatur i 30 min. Bundne antistoffer blev påvist under anvendelse af diaminobenzidin. Til sidst blev objektglassene modfarvet med hæmatoxylin. Billeder blev taget ved hjælp af et lysmikroskop (x200 forstørrelse). Statistisk analyse. Data præsenteres som gennemsnit ± standardafvigelse og blev analyseret ved hjælp af SPSS 20.0 til Windows (IBM Corp.). Alle forsøg blev gentaget 3 gange. Forskellene mellem flere grupper blev analyseret ved hjælp af envejs ANOVA og Tukeys posthoc test. P<0.05 was="" considered="" to="" indicate="" a="" statistically="" significant="">

Virkninger af cistanche: gavner nyre
Resultater
IgG-ekspression i renale tubulære epitelceller i nyrebarken.Normale nyrecortex, som blev indsamlet fra donorer, der gennemgår nefrektomi som et resultat af nyrecellekarcinom, blev brugt til at bestemme IgG-ekspressionen i renale tubulære epitelceller ved immunhistokemi ved anvendelse af antistoffer mod humant Ig, Igκ, Igλ og RP215 (et antistof, der overvejende binder til ikke-B-IgG). Positiv farvning af IgG tunge og lette kæder blev ikke kun detekteret i PTEC'erne, men også i distale indviklede tubuli epitelceller, enten i cytoplasma, cellemembran eller tubulær lumen (fig. 1).
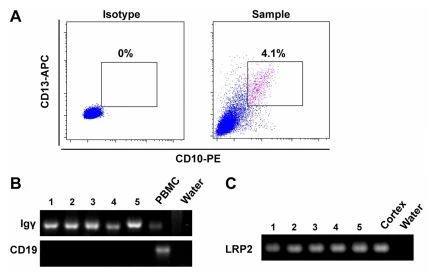
Transkription og V(D)J-rekombination af IgG i enkelte PTEC'er. For at undgå interferens af resterende blod, binding og transcytose af IgG af PTEC'er i nyrebarken og for at opnå direkte beviser for IgG-ekspression i PTEC'er, blev enkelte PTEC'er sorteret fra den humane nyrebark ved hjælp af CD10 og CD13 co-mærkning ved flow cytometri (20). Som vist i fig. 2A udgjorde CD10/CD13 dobbeltpositive PTEC'er 4,1 procent af levedygtige celler i prøven. De isolerede PTEC'er blev yderligere bekræftet ved hjælp af det specifikke markørgen LRP2, og B-cellekontamination blev elimineret af CD19. Ig variabel region-transkripter blev amplificeret i fem enkelte PTEC'er ved indlejret PCR (fig. 2B og C). Sanger-sekventeringsresultater afslørede, at PTEC'er udviste funktionel og konservativ VDJ-rekombination af IgG tung kæde (tabel I), hvilket indikerer, at IgG-ekspression kan forekomme i PTEC'er.
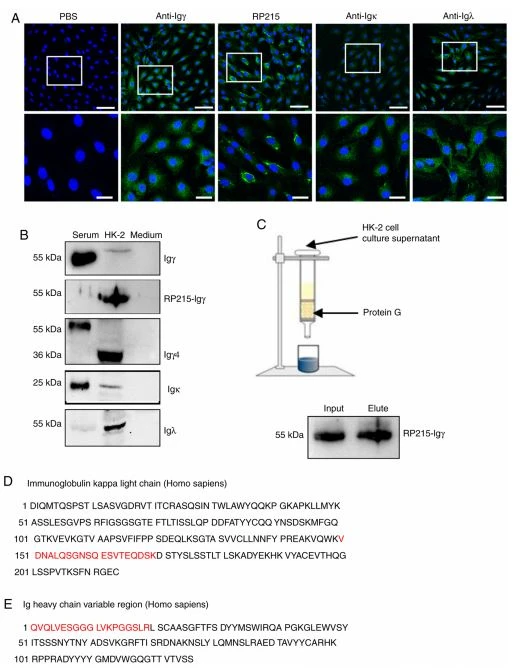
IgG tung og let kæde ekspression i HK-2 celler. Da det var vanskeligt at påvise IgG-proteinekspression i en enkelt PTEC og at opnå nok PTEC'er til western blotting, blev HK-2-cellelinjen, som består af udødeliggjorte PTEC'er, udvalgt for yderligere at bekræfte IgG-proteinekspression. Immunfluorescensanalyse viste positiv farvning af Ig, Igκ og Igλ i cytoplasmaet og stærkere positiv farvning af RP215 overvejende i cytoplasmaet og cellemembranen (fig. 3A).
Efterfølgende blev ekspressionen af IgG tunge og lette kæder i HK-2 celler påvist ved western blotting under reducerende betingelser. For at eliminere FBS-interferens i dyrkningsmediet blev mediet indeholdende FBS blottet med tilsvarende antistoffer og farvet negativt. Et kommercielt IgG-antistof var i stand til at påvise serum-afledt IgG, men ikke HK-2-afledt IgG. I modsætning hertil kunne RP215 detektere HK-2-afledt IgG, men ikke serum IgG. Både kommercielt IgG-antistof og RP215 var i stand til at påvise Ig ved 55 kDa. Et Ig 4 (36 kDa) bånd blev påvist i HK-2 celler, i overensstemmelse med den forudsagte molekylvægt. Ydermere blev Igκ (25 kDa) og Igλ (50 kDa, dimer) ekspressioner observeret i cellelysaterne (fig. 3B). Efterfølgende blev IgG i cellesupernatanten oprenset med protein G, bekræftet ved western blotting og sekventeret ved massespektrometri, som viste, at 55-kDa-båndet indeholdt fragmenter af Igκ-kæden og Ig-tungkædens variable region, ifølge National Center for Bioteknologisk information (NCBI) database (fig. 3C-E). Disse data antydede, at HK-2-celler producerede og udskilte IgG-protein.

Transkription og V(D)J-rekombination af IgG-tunge og lette kæder i HK-2-celler. Ig-gentransskription og funktionel V(D)J-rekombination er en forudsætning for Ig-ekspression. For at bekræfte ekspressionen af IgG i HK-2-celler blev Ig-, Igκ- og Igλ-transkripter vurderet ved at amplificere de konstante og variable regioner i HK-2-celler (fig. 4A og B). Sekventering af de konstante PCR-produkter udviste høj homologi med den publicerede sekvens i NCBI-databasen. T-A-kloning og Sanger-sekventering viste, at Ig i HK-2-celler udviste konservativ V(D)J-rekombination med VH4-4/D2-8/JH5. I modsætning hertil blev mangfoldigheden af V(D)J-rekombination observeret i PBMC'er, som eliminerede primerbias (tabel II). I lighed med B-celler udviste HK-2-afledt IgG typisk produktiv V(D)J-rekombination med V-D- og D-J-forbindelserne (fig. 4C). Desuden blev de somatiske hypermutationer detekteret i HK-2-afledt Ig (interval, 6,8-8,4 procent) med 7 ud af 15 hotspot-motiver (RGYW/WRCY, W=A/T, R= A/G, Y=C/T) med mutationer.

Derudover blev AID-transkriptioner (et væsentligt element for somatisk hypermutation og klasseskiftrekombination i B-celler) og RAG1 og RAG2 [nødvendigt for V(D)J-rekombination] påvist i HK-2-celler (fig. 4B), hvilket indikerer, at mekanismen, der ligger til grund for Ig-syntese i HK-2-celler, kan ligne den i B-celler.
TGF‑1 opregulerer IgG-ekspression i HK‑2-celler. HK‑2-celler blev stimuleret med forskellige koncentrationer af TGF‑1 i 48 timer. Immunfluorescensfarvning afslørede, at cytoplasmatisk IgG udviste forbedret positiv farvning sammenlignet med kontrolgruppen (fig. 5A). Western blotting bekræftede, at IgG var signifikant opreguleret af TGF-1 (P<0.05; fig.="" 5b="" and="">

Virkninger af cistanche: gavner nyre
Diskussion
Den nuværende undersøgelse viste, at PTEC'er udtrykte IgG med gentranskription og funktionel konservativ V(D)J-rekombination, som svarede til ikke-B-IgG. TGF-1 opregulerede IgG-ekspression i HK2-celler.
For at undersøge, om PTEC'er udtrykte IgG, blev IgG først påvist i cytoplasma, cellemembran og lumen af PTEC'er i den normale humane nyrebark ved immunhistokemi; resultaterne indikerede, at PTEC'er producerede og udskilte IgG. Dette er i modsætning til vores rutinemæssige patologiske undersøgelse, hvor der ikke blev påvist nogen synlig IgG i PTEC'er. Dette kan skyldes meget svag PTEC-farvning, som var for lav til at kunne påvises, især ved immunrelaterede glomerulære sygdomme, hvor Igs er stærkt positive i glomeruli og PTEC-farvning kan gå utilsigtet, men kunstigt tabt. IgG-transcytose fra cirkulationen af PTEC'er via Fc-receptoren blev delvist udelukket, da der blev observeret tydelig farvning af IgG af RP215 i cellemembranen og cytoplasmaet. Disse resultater tydede på, at PTEC-afledt IgG lignede andre ikke-B-IgG og kan have unikke glycosylerede epitoper, som specifikt kan genkendes af RP215 i stedet for et kommercielt anti-IgG-antistof (15). Konstateringen af, at kun en del af tubulære epitelceller udtrykker IgG, kan forklares ved dynamisk ekspression ved forskellige cellecyklusser, som svarede til ekspressionsmønsteret for mesangialcelle-afledt IgA (18). Co-farvning af IgG med rørformede markører (såsom aquaporin 1 og aquaporin 3) ville være nyttig for yderligere undersøgelser for at forbedre resultaterne af denne undersøgelse.

Enkeltcellet RNA-sekventering kan tydeligt vise transkriptionen af et specifikt gen i en given celle. Transkripter af Ig-kæden og V(D)J-rekombination blev påvist i enkelte PTEC'er. Selvom der kun blev brugt fem enkelte PTEC'er, var processen streng, da nyrebarken blev opsamlet langt fra tumoren, og hver enkelt celle blev sorteret ved flowcytometri med to PTEC-specifikke markørgener, genbekræftet ved hjælp af et tredje specifikt markørgen (LRP2) og B-cellekontamination blev elimineret. Resultaterne afslørede, at PTEC'er ikke kun præsenterer med IgG-gentranskripter, men også den klassiske V(D)J-rekombination i den variable region som B-celler, såsom den produktive V(D)J-rekombination med V-D og D-J junctions (fig. 4), hvilket indikerer, at PTEC'er har potentialet til at producere IgG. Derudover illustrerede den mere konservative V(D)J-rekombination, at PTEC'er præsenteres med IgG-gentranskripter og V(D)J-rekombination, der ligner andre ikke-B-celler.
HK-2, en udødeliggjort PTEC-linje, er let at dyrke i store mængder. Den nuværende undersøgelse bekræftede IgG-proteinekspression i dyrkede HK-2-celler; IgG blev påvist i HK-2-celler ved både immunfluorescens og western blotting. Ig4, en underklasse af Ig, blev også påvist ved en båndstørrelse i overensstemmelse med den forudsagte molekylvægt. Massespektrometri afslørede, at proteinet oprenset fra cellesupernatant under anvendelse af protein G indeholdt fragmenter af Ig-tungkædens variable region og IgK-kæden, hvilket gav bevis for IgG-sekretion af PTEC'er. IgG-transkription i HK-2-celler understøttede yderligere IgG-ekspression i PTEC'er, og den konservative V(D)J-rekombination med IGHV4-4/IGHD2-8/IGHJ5 i HK-2-celler understøttede yderligere tilstedeværelsen af IgG i HK-2-celler lignende til andre ikke-B-celler.
Denne undersøgelse undersøgte også den underliggende mekanisme for IgG-produktion i PTEC'er ved at undersøge transkriptionen af RAG1, RAG2 og AID i HK-2-celler. Det blev afsløret, at RAG1, RAG2 og AID blev transskriberet i HK-2-celler. Derudover er RAG1-, RAG2- eller AID-transskriptioner tidligere blevet påvist i adskillige andre ikke-B-celler, såsom podocytter (19) og adskillige cancercellelinjer (23). Disse resultater antydede, at ikke-B-celler, herunder PTEC'er, kan have lignende mekanismer for Ig-syntese som B-celler. Om AID og/eller RAG1/2 er nødvendige gener for PTEC-afledt IgG kræver imidlertid yderligere undersøgelse. Derudover er follikulære hjælper CD4 T-celler vigtige for at regulere germinal center B-celledifferentiering til plasmaceller og understøtte produktionen af Ig'er (24). Vores upublicerede data afslørede, at ikke-B-Ig'er stadig blev påvist i T- og B-celle-deficiente NOD-SCID-mus, hvilket indikerer, at ikke-B-Ig'er ikke var helt afhængige af T-hjælperceller. Hvorvidt T-hjælperceller er nødvendige for at PTEC'er kan udtrykke IgG, kræver yderligere forskning.

TGF-1 har en central immunmodulerende rolle i Ig-produktion. For eksempel inducerede TGF-1 IgA-klasseskift og sekretion i stimulerede B-celler i musemilt (25) og humane tonsil B-celler (26). McIntyre et al (27) påviste, at TGF-1 selektivt stimulerede IgG2b-sekretion af lipopolysaccharid-aktiverede B-celler, højst sandsynligt ved at inducere en IgM til IgG2b-klasseskift. Duan et al (28) viste, at TGF-1 øgede IgA-ekspression ved at opregulere transkriptionsfaktoren Ets-1 i epitelkræftceller. Den nuværende undersøgelse viste, at TGF-1 opregulerede IgG-ekspression i HK-2-celler. I betragtning af, at kun IgG blev påvist i HK-2-celler, blev det antaget, at TGF-1 inducerede IgG-ekspression uafhængigt af Ig-klasseskift. Den regulatoriske mekanisme for IgG-produktion af TGF-1 kræver yderligere undersøgelse.
PTEC'er tjener en vigtig rolle i tubulær interstitiel fibrose gennem EMT og TGF-1 fungerer som en master profibrotisk mediator. I denne undersøgelse øgede tilføjelsen af TGF-1 til dyrkede HK-2-celler IgG-ekspression, hvilket indikerer, at HK-2-afledt IgG kan være positivt forbundet med EMT. Tidligere undersøgelser har rapporteret, at cancer-IgG var forbundet med metastaser og fremmede EMT ved at reducere E-cadherin i spyt adenoid cystisk carcinom (29) og lungekræft (30). Det er værd at undersøge, om PTEC-afledt IgG kan tjene en rolle i renal tubulær EMT og interstitiel fibrose under sygdomstilstande, såsom iskæmi/reperfusionsskade ellerkronisk nyresygdom.
Som konklusion, så vidt vi ved, var denne undersøgelse den første til at demonstrere, at PTEC'er kan udtrykke og udskille IgG, og TGF-1 kan opregulere IgG-ekspression i HK-2-celler. Imidlertid kræver den potentielle rolle af PTEC-afledt IgG i tubulointerstitiel fibrose yderligere undersøgelse.

Virkninger af cistanche: gavner nyre
Finansiering
Denne undersøgelse blev støttet af tilskud fra Kinas National Natural Science Foundation (bevillingsnr. 82070736, 91642109 og 81870488), Hainan Natural Science Foundation (bevillingsnr. 819QN355), Hainan Medical University Scientific Research Cultivation Foundation (bevillingsnr. HYPY201926), og de centrale støtteprojekter fra National Natural Science Foundations store forskningsprogram (bevilling nr. 91642206).
Tilgængelighed af data og materialer
De datasæt, der anvendes og/eller analyseres under den aktuelle undersøgelse, er tilgængelige fra den tilsvarende forfatter på rimelig anmodning.
Forfatteres bidrag
Som de tilsvarende forfattere udtænkte og designede YW og XQ undersøgelsen. ZD deltog i forskningsdesignet, udførte histologiske og enkeltcellede eksperimenter, forberedte prøver til massespektrometri, analyserede data og skrev manuskriptet. ZJ deltog i forskningsdesignet, de fleste eksperimenter vedrørende IgG-ekspression i HK-2-celler og relevant dataanalyse. YG, JM, HD og YL udførte partielle cellelinjeeksperimenter. ZC og YP valgte passende tilfælde til enkeltcelleforsøg i henhold til kliniske karakteristika. HY og ZS deltog i enkeltcellede eksperimenter. SW deltog i immunhistokemisk farvning, analyserede vævsfarvningsdata og udarbejdede og reviderede manuskriptet. YW, ZD og ZJ bekræftede ægtheden af alle de rå data. Alle forfattere gennemgik manuskriptet og reviderede dataene. Alle forfattere læste og godkendte det endelige manuskript.
Etisk godkendelse og samtykke til deltagelse
Denne undersøgelse var i overensstemmelse med principperne i Helsinki-erklæringen og blev godkendt af den medicinske etiske komité på Peking Universitets tredje hospital (godkendelsesnr. S2020121) og udført i overensstemmelse med protokollen. Alle donorer donerede frivilligt nyrecortex og gav skriftligt informeret samtykke, før de donerede nyrebarken til undersøgelsen. Alle metoder blev udført i overensstemmelse med relevante retningslinjer og forskrifter. Disse prøver blev strengt anonymiseret. Humant serum og PBMC'er, anvendt som positive kontroller i western blotting eller revers transkription-PCR i denne undersøgelse, blev opnået fra blodet fra en rask frivillig, som gav skriftligt informeret samtykke til prøveudtagning.
Virkninger af cistanche: gavner nyre
Referencer
1. Schlondorff DO: Oversigt over faktorer, der bidrager til patofysiologien af progressiv nyresygdom. Kidney Int 74: 860-866, 2008.
2. Donadio ME, Loiacono E, Peruzzi L, Amore A, Camilla R, Chile F, Vergano L, Boido A, Corrieri M, Bianciotto M,et al: Toll-lignende receptorer, immunproteasom og regulatoriske T-celler hos børn med Henoch-Schonlein purpura og primær IgA nefropati. Pediatr Nephrol 29: 1545-1551, 2014.
3. Breda PC, Wiech T, Meyer-Schwesinger C, Grahammer F, Huber T, Panzer U, Tiegs G og Neumann K: Renale proksimale tubulære epitelceller udøver immunmodulerende funktion ved at drive inflammatoriske CD4 plus T-celleresponser. Am J Physiol Renal Physiol 317: F77-F89, 2019.
4. Liu BC, Tang TT, Lv LL og Lan HY: Nyretubuliskade: En drivkraft mod kronisk nyresygdom. Kidney Int 93: 568-579, 2018.
5. Kobayashi N, Suzuki Y, Tsuge T, Okumura K, Ra C og Tomino Y: FcRn-medieret transcytose af immunoglobulin G i humane renale proksimale tubulære epitelceller. Am J Physiol Renal Physiol 282: F358-F365, 2002.
6. Qiu X, Zhu X, Zhang L, Mao Y, Zhang J, Hao P, Li G, Lv P, Li Z, Sun X,et al: Humane epitelkræftformer udskiller immunoglobulin g med uidentificeret specificitet for at fremme vækst og overlevelse af tumorceller. Cancer Res 63: 6488-6495, 2003.
7. Zheng J, Huang J, Mao Y, Liu S, Sun X, Zhu X, Ma T, Zhang L, Ji J, Zhang Y,et al: Immunoglobulingentranskripter har distinkte VHDJH-rekombinationskarakteristika i humane epitelkræftceller. J Biol Chem 284: 13610-13619, 2009.
8. Jiang D, Ge J, Liao Q, Ma J, Liu Y, Huang J, Wang C, Xu W, Zheng J, Shao W,et al: IgG og IgA med potentiel mikrobiel-bindende aktivitet udtrykkes af normale humane hudepidermale celler. Int J Mol Sci 16: 2574-2590, 2015.
9. Zhu Z, Zhang M, Shao W, Wang P, Gong X, Ma J, Qiu X og Wang B: Immunoglobulin M, et nyt molekyle af myokardieceller fra mus. Int J Biochem Cell Biol 88: 172-180, 2017.
10. Niu N, Zhang J, Sun Y, Wang S, Sun Y, Korteweg C, Gao W og Gu J: Ekspression og distribution af immunoglobulin G og dets receptorer på et immunprivilegeret sted: Øjet. Cell Mol Life Sci 68: 2481-2492, 2011.
11. Huang J, Sun X, Mao Y, Zhu X, Zhang P, Zhang L, Du J og Qiu XY: Ekspression af immunoglobulingen med klassisk V-(D)-J-omlejring i musehjerneuroner. Int J Biochem Cell Biol 40: 1604-1615, 2008.
12. Niu N, Zhang J, Guo Y, Zhao Y, Korteweg C og Gu J: Ekspression og distribution af immunglobulin G og dets receptorer i det menneskelige nervesystem. Int J Biochem Cell Biol 43: 556-563, 2011.
13. Li J, Korteweg C, Qiu Y, Luo J, Chen Z, Huang G, Li W og Gu J: To ultrastrukturelle distributionsmønstre af immunoglobulin G i human placenta og funktionelle implikationer. Biol Reprod 91: 128, 2014.
14. Huang J, Zhang L, Ma T, Zhang P og Qiu X: Ekspression af immunoglobulingen med klassisk V-(D)-J-omlejring i musetestis og epididymis. J Histochem Cytochem 57: 339-349, 2009.
15. Tang J, Zhang J, Liu Y, Liao Q, Huang J, Geng Z, Xu W, Sheng Z, Lee G, Zhang Y,et al: Lungepladecellecarcinomceller udtrykker ikke-kanonisk glykosyleret IgG, der aktiverer integrin-FAK-signalering. Cancer Lett 430: 148-159, 2018.
16. Cui M, You L, Zheng B, Huang X, Liu QF, Huang J, Pan B, Qiu X, Liao Q og Zhao Y: Høj ekspression af cancer-afledt glycosyleret immunoglobulin G forudsiger dårlig prognose i pancreas duktalt adenokarcinom. J Cancer 11: 2213-2221, 2020
17. Cui M, Hu Y, Zheng B, Zhang S, Zhang X, Wang M, Qiu XY, Liao Q og Zhao YP: Kræftafledt immunglobulin G: En ny markør for differentialdiagnose og forudsigelse af tilbagefald i parathyreoideacarcinom. Clin Endocrinol (Oxf) 92: 461-467, 2020.
18. Deng H, Ma J, Jing Z, Deng Z, Liang Y, AL, Liu Y, Qiu X og Wang Y: Ekspression af immunoglobulin A i humane mesangiale celler og dets virkninger på celleapoptose og adhæsion. Mol Med Rep 17: 5272-5282, 2018.
19. Jing Z, Deng H, Ma J, Guo Y, Liang Y, Wu R, AL, Geng Z, Qiu X og Wang Y: Ekspression af immunoglobulin G i humane podocytter og dets rolle i cellelevedygtighed og adhæsion. Int J Mol Med 41: 3296-3306, 2018.
20. Van der Hauwaert C, Savary G, Gnemmi V, Glowacki F, Pottier N, Bouillez A, Maboudou P, Zini L, Leroy X, Cauffiez C,et al: Isolering og karakterisering af en primær proksimal tubulær epitelcellemodel fra den humane nyre ved CD10/CD13 dobbeltmærkning. PLoS One 8: e66750, 2013.


