

Fejl i visuospatial arbejdshukommelse på tværs af rum og tid
Mar 21, 2022
Kontakt: Audrey Hu Whatsapp/hp: 0086 13880143964 E-mail:audrey.hu@wecistanche.com
Visuospatialarbejdshukommelse(VSWM) involverer kortikale regioner langs den dorsale synsvej, som er topografisk organiseret i forhold til det visuelle rum. Det er dog stadig uklart, hvordan en sådan funktionel organisation kan begrænse VSWM-adfærd på tværs af rum og tid. Her kortlagde vi systematisk VSWM-ydeevne på tværs af det {{0}}dimensionelle (2D) rum i forskellige retentionsintervaller hos menneskelige forsøgspersoner ved at bruge de hukommelsesstyrede og visuelt guidede saccade-opgaver i to eksperimenter. I forhold til visuelt guidede saccader viste hukommelsesguidede saccader signifikante stigninger i usystematiske fejl eller responsvariabilitet med stigende målexcentricitet (3 grader –13 grader af synsvinkel). Usystematiske fejl steg også med stigende forsinkelse (1,5-3 s, eksperiment 1; 0,5-5 s, eksperiment 2), mens der var ringe eller ingen interaktion mellem forsinkelse og excentricitet. Kontinuerlig bump attractor-modellering antydede neurofysiologiske og funktionelle organisationsfaktorer i de stigende usystematiske fejl i VSWM på tværs af rum og tid. Disse resultater indikerer, at: (1) VSWM-repræsentation kan være begrænset af den funktionelle topologi af den visuelle vej for 2D-rummet; (2) Usystematiske fejl kan afspejle akkumuleret støj fravedligeholdelse af hukommelsenmens systematiske fejl kan stamme fra ikke-mnemoniske processer såsom støjende sensorimotorisk transformation; (3) Der kan være uafhængige mekanismer, der understøtter den rumlige og tidsmæssige behandling af VSWM.

VIRKNINGER AF CISTANCHE-SUPPLEMENT: FORBEDRE HUKOMMELSEY
Visuospatial arbejdshukommelse(VSWM) henviser til midlertidig vedligeholdelse og manipulation af visuospatial information for at planlægge og vejlede adfærd. På trods af sin centrale rolle i kognition af højere orden1, viser VSWM varierende grader af præcision. De seneste undersøgelser har fremhævet stigningen i genkaldelsesfejl i VSWM med sætstørrelse 2-4, mens virkningerne af rum og tid på VSWM-troskab og de underliggende neurale mekanismer forbliver uklare. Denne undersøgelse havde til formål at undersøge variabiliteten i VSWM-ydeevne på tværs af todimensionelt (2D) rum og tid ved at bruge både adfærdseksperimenter og neurofysiologi-baseret beregningsmodellering.
Tidligere adfærdsundersøgelser af mennesker og makaker har fundet ud af, at VSWM-ydeevne under en forsinket responsopgave varierer på tværs af rumlige placeringer. Der er blevet observeret både systematiske fejl, ændringen af de gennemsnitlige responsplaceringer og usystematiske fejl, fluktuationen i svarene omkring middelplaceringen. Imidlertid er adfærdsmønsteret for disse fejl inkonsekvent på tværs af undersøgelser, og de neurale kilder til disse fejl er ukendte. Undersøgelser, der anvender et oculomotorisk forsinket respons-paradigme5 i makaker, viste, at saccader til huskede steder udviser en systematisk opadgående bias, med saccade-endepunkter systematisk forskudt over målet6-8. Disse undersøgelser rapporterer også, at både systematiske og usystematiske fejl varierer på tværs af rummet, og at disse fejl ser ud til at stige med stigende excentricitet6–8. I modsætning hertil viste nogle undersøgelser9 en foveal bias, der øges med excentricitet hos mennesker, ved at bruge en opgave, der kræver at genkalde en enkelt husket prikposition via museklik. Andre fandt en kvadrantbias i rumlighukommelsehuske, at tiltrak mod midten af kvadranten hos ikke-menneskelige primater10 og mennesker11,12. Således forbliver det nøjagtige mønster af VSWM-fejl på tværs af 2D-rum uklart.
En hovedkilde til VSWM-variabilitet på tværs af rummet er sandsynligvis de funktionelle topografiske begrænsninger af de underliggende neurale substrater. Et distribueret netværk af dorsale kortikale regioner understøtter VSWM-behandling13-18, hvoraf de fleste udviser en form for topografisk kortlægning af det visuelle rum. Retinotopiske kort er ikoniske i den tidlige visuelle cortex, hvor nærliggende neuroner har modtagelige felter på tilstødende rumlige steder i det visuelle felt19-22. Lignende implikationer er blevet gjort for humane posteriore parietale regioner, herunder den intraparietale sulcus eller det laterale intraparietale område23-26, og præfrontale regioner, herunder den præcentrale sulcus eller frontale øjenfelter27-31. Da den retinotopiske organisation af det visuelle system fra nethinden til de ekstrastriate områder ikke er ensartet i rummet, kan det potentielt begrænse VSWM-repræsentation på tværs af synsfelterne og repræsentation i nedstrømsområderne.
Integrative Neuroscience Program, Institut for Psykologi, Stony Brook University, Stony Brook, NY 11794, USA.
Der er mindst to egenskaber ved den retinotopiske organisation, der kan begrænse behandlingen og repræsentationen af visuospatial information på tværs af rummet, herunder variationen i fotoreceptorer og retinal gangliecelletæthed på tværs af nethinden32,33 og kortikal forstørrelse af det centrale syn34-41. VSWM-præstationer, afspejlet af både middelværdi og variabilitet af responser, er måske mindre nøjagtige for perifere mål, da den kortikale forstørrelsesfaktor falder, og den receptive feltstørrelse øges med stigende målexcentriciteter i den primære visuelle cortex38-41. Det er også usikkert, i hvor høj grad den funktionelle arkitektur af nedstrøms områder yderligere kan forvrænge VSWM-repræsentation på tværs af synsfelterne. Neuroner i de parietale og især frontale regioner har betydelige receptive feltstørrelser (op til 30 graders diametre), og disse højere-ordens regioner har meget grovere funktionelle organisationer sammenlignet med de visuelle områder42-46. Det er stadig ukendt, om parietale og frontale regioner udviser en faktisk rumlig topografi, bortset fra en nogenlunde kontralateral hemisfærisk repræsentation. For eksempel foreslog en nylig undersøgelse af ikke-menneskelige primater en ikke-retinotopisk organisation i den dorsolaterale præfrontale cortex, der groft opdeler det visuelle-mnemoniske rum i kvadranter10.

Figur 1. Eksperimentelt opgavedesign og stimuli. Fordeling af visuelle stimuli over rummet i eksperiment 1 (a) og eksperiment 2 (b). Stimulusplaceringer på tværs af forsøg er let rystede omkring målene. Hukommelsesstyret saccade-opgave (c) og visuelt guidet saccade-opgave (d). Pilene i (c) og (d) er vist for at illustrere den hukommelsesstyrede eller visuelt guidede saccade, som ikke er vist under de egentlige eksperimenter.
VSWM-præcision varierer ikke kun på tværs af rummet, men ændrer sig også over tid. Tidsforløbet for systematiske og usystematiske fejl i VSWM-repræsentation er ikke velkarakteriseret. Nogle undersøgelser af ikke-menneskelige primater fandt stigninger i usystematiske fejl med stigende forsinkelsesvarighed i op til 20 s8,47. I modsætning hertil viste andre, at usystematiske fejl akkumulerede inden for de første 800 ms af forsinkelsen og forblev stabile6. Tilsvarende foreslog nogle, at de fleste systematiske fejl akkumulerede inden for det første sekund af forsinkelsen6,8, mens andre viste en stigning i den systematiske bias med forsinkelser på op til 3 s9,48–50. En af de primære kilder til VSWM-fejl over tid kan være støjakkumulering overhukommelsevedligeholdelse. Dorsolateralt præfrontalt tilbagevendende mikrokredsløb genererer selvopretholdt neural aktivitet frem for arbejdehukommelseforsinkelse, potentielt opretholdelse af mnemonisk indhold over tid15. En sådan vedvarende aktivitet er karakteriseret ved attraktornetværksmodeller med lokale tilbagevendende excitationer og brede hæmninger i et topografisk organiseret kredsløb51-53, der demonstrerer stokastiske drev over forsinkelse i fravær af eksterne input. Drives af bump-aktiviteterne er forbundet med variation i adfærdsfejl fra forsøg til forsøg over en forsinkelse52.
Her undersøgte vi VSWM-repræsentation på tværs af rum og tid i to eksperimenter ved systematisk at kortlægge adfærdsmæssige præstationsfejl på tværs af 2D-rum og tid hos menneskelige forsøgspersoner (fig. 1). I begge eksperimenter registrerede vi øjenpositioner under en memory-guided saccade (MGS) og en visuelt guidet saccade (VGS) opgave. Vi sammenlignede systematiske og usystematiske fejl i de primære og sekundære saccade-endepunkter på tværs af forskellige excentriciteter og forskellige længder afhukommelseforsinkelser og udforskede potentielle interaktioner mellem disse to parametre. Vi forventede, at både systematiske og usystematiske fejl ville stige med stigende visuel excentricitet, men kun usystematiske fejl ville stige med længere forsinkelsesintervaller. Derudover anvendte vi en almindeligt anvendt endimensionel (1D), kontinuerlig bump-attraktionsmodel for at simulere, i hvilket omfang støjen, der akkumulerede over en forsinkelse i det tilbagevendende mikrokredsløb, kan bidrage til de observerede adfærdsfejlmønstre. Neural dynamik ved forskellige excentriciteter blev modelleret af forskellige antal neuroner i modellen, hvor flere neuroner indekserede kortikal forstørrelse ved en mindre excentricitet.
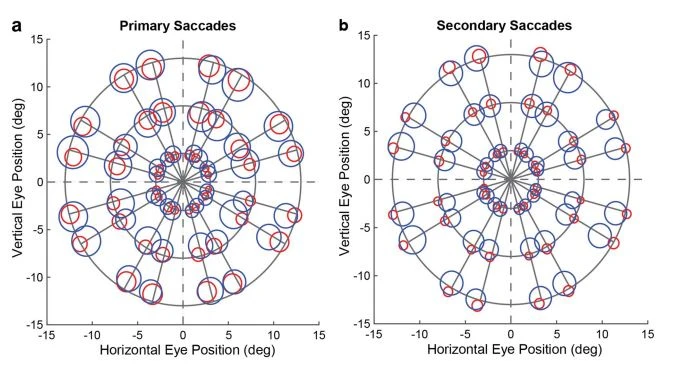
Figur 2. Gruppegennemsnit af systematiske og usystematiske fejl på tværs af rummet. De blå (MGS) og røde (VGS) cirkler illustrerer den gennemsnitlige placering af og variabilitet i de primære saccade-endepunkter (a) og sekundære saccade-endepunkter (b). Målplaceringer vises som skæringspunktet mellem de ubrudte grå linjer. Midten af hver blå/rød cirkel repræsenterer det gennemsnitlige saccade-endepunkt (systematiske fejl), mens radius repræsenterer saccade-endepunktvariabiliteten (usystematiske fejl) i gennemsnit på tværs af forsøgspersoner ved hver målplacering af eksperiment 1. Alle datafigurer i manuskriptet blev genereret i MATLAB54 .
Resultater
Forsøg 1.
Saccade-endepunktsbias og variabilitet. Eksperimentelle opgaver og visuelle stimuli er vist i fig. 1. For at visualisere de overordnede mønstre af systematiske og usystematiske fejl i MGS'en i forhold til VGS'en viste vi den gennemsnitlige variabilitet og gennemsnitlige endepunkter for de primære (fig. 2a) og sekundære (fig. 2a) 2b) saccader for hver målplacering. En systematisk indad/foveal og vinkel skævhed på tværs af rummet var tydelig i MGS (Fig. 2; Supplerende Fig. S1-S2). Sammenlignet med visuelt guidede svar,hukommelse-guidede saccader var mindre nøjagtige (t(9)=4.30, p=.002) og viste større variabilitet (t(9)=7.95, p<.001) in="" endpoint="" positions.="" as="" expected,="" the="" secondary="" saccades="" were="" more="" accurate="" (t(9)="3.47," p=".007)" and="" less="" variable="" (t(9)="13.50,"><.001) relative="" to="" the="" primary="" saccades,="" refecting="" response="" correction.="" figure="" 3="" shows="" the="" saccade="" endpoint="" distribution="" across="" eccentricities="" and="" delays="" of="" one="" typical="">
Effekt af målexcentricitet på VSWM-fejl. Gentagne foranstaltninger ANOVA undersøgte virkningerne inden for emnet af excentricitet (3, 8, vs. 13 grader af synsvinkel) og opgave (MGS vs. VGS) (Tabel 1A; Fig. 4, øverste række). Vi observerede signifikante hovedeffekter af excentricitet og opgavetype for både systematiske og usystematiske fejl i de primære og sekundære saccade-endepunkter. Samspillet mellem opgave og excentricitet var dog kun statistisk signifikant for de usystematiske fejl (fig. 4c, d). Yderligere analyser viste, at de usystematiske fejl steg signifikant med stigende excentricitet lineært (primære saccader, t=6.56, s.<.001; secondary="" saccades,="" t="10.22,"><.001) and="" quadratically="" (primary="" saccades,="" t="−" 4.41,="" p=".003;" secondary="" saccades,="" t="−" 2.58,="" p=".059)" in="" the="" mgs,="" but="" only="" linearly="" (primary="" saccades,="" t="9.98,"><.001; secondary="" saccades,="" t="13.29,"><.001) in="" the="" vgs.="" interaction="" contrast="" analyses="" further="" confirmed="" a="" stronger="" linear="" (primary="" saccades,="" p="">.5; sekundære saccader, t(9)=6.54, s<.001) and="" quadratic="" trend="" (primary="" saccades,="" t(9)="−" 3.46,="" p=".014;" secondary="" saccades,="" p="">.1) in the MGS than the VGS for the unsystematic errors. The quadratic effect came from the smaller increase in response error from the eccentricity of 8° to 13° than from 3° to 8°. Both tasks showed similar linear trends of eccentricity for the systematic errors (p's>.7; data ikke vist). Sammenfattende viste saccade-endepunktsfejl under MGS stigninger i bias og variabilitet med stigende excentricitet, med MGS-variabilitetsmønsteret både kvantitativt og kvalitativt forskelligt fra VGS-mønsteret.


Tabel 1. Variansanalyser med gentagne foranstaltninger på VSWM-fejl i eksperiment 1. "a" angiver p-værdi korrigeret ved hjælp af Greenhouse-Geisser-metoden på grund af krænkelse af sfæricitet.

Figur 4. Saccade-endepunktsfejl på tværs af opgaver, excentriciteter og forsinkelser i eksperiment 1. Den øverste række viser fejl i MGS (sort) og VGS (lysegrå) på tværs af forskellige målexcentriciteter. Den nederste række viser fejl i MGS på tværs af forskellige forsinkelsesintervaller for hver målexcentricitet (3 grader, lysegrå; 8 grader, grå; 13 grader, sort). Både systematiske og usystematiske fejl steg med stigende excentricitet, med en større lineær og kvadratisk stigning i MGS end i VGS for de usystematiske fejl. Usystematiske fejl i MGS akkumulerede fra 1.5-s til 3-s forsinkelsesintervaller signifikant for de primære og sekundære saccader i et lignende mønster på tværs af excentriciteter.
Effekt af forsinkelse på VSWM-fejl på tværs af excentricitet. For at undersøge, hvordan VSWM-fejl varierede på tværs af forsinkelsesvarigheder ved de forskellige excentriciteter, udførte vi en to-vejs gentagne målinger ANOVA med excentricitet (3, 8, vs. 13 grader af synsvinkel) og forsinkelse (1,5, 2 vs. 3 s). som inden for emnet faktorer. Vi fandt en signifikant hovedeffekt af forsinkelse i usystematiske fejl, men ikke systematiske fejl (tabel 1B; fig. 4, nederste række). Specifikt steg usystematiske fejl under MGS med forsinkelsesvarigheder lineært for både de primære og sekundære saccader (henholdsvis: t(9)=4.82, p=.002; t(9){{18 }}.36, s<.001), showing="" significant="" increases="" from="" the="" 1.5-s="" to="" 3-s="" delay="" conditions="" (primary="" saccades,="" t(9)="4.82," p=".003;" secondary="" saccades,="" t(9)="7.36,"><.001) and="" from="" the="" 2-s="" to="" 3-s="" delay="" conditions="" (primary="" saccades,="" t(9)="3.17," p=".034;" secondary="" saccades,="" t(9)="6.13,"><>
Der var dog ingen signifikante interaktioner mellem excentricitet og forsinkelse i MGS, bortset fra de systematiske fejl i de sekundære saccader (fig. 4f). Interaktionseffekten var relateret til et lineært fald i systematiske fejl med stigende forsinkelse ved den største excentricitet (13 graders synsvinkel) i modsætning til en lineær stigning ved midten af excentriciteten (8 graders visuel vinkel) (linearitetskontrast: t(9) )=− 3,53, p=.039), selvom begge lineære tendenser ikke var statistisk signifikante (8 grader af synsvinkel: t=1.64, p=. 27; 13 graders synsvinkel: t=− 2.10, p=.13). Forsinkelsen ved excentricitetsinteraktion nærmede sig betydning for de usystematiske fejl i de sekundære saccader.

VIRKNINGER AF CISTANCHE-SUPPLEMENT: FORBEDR HUKOMMELSEN
Forsøg 2.
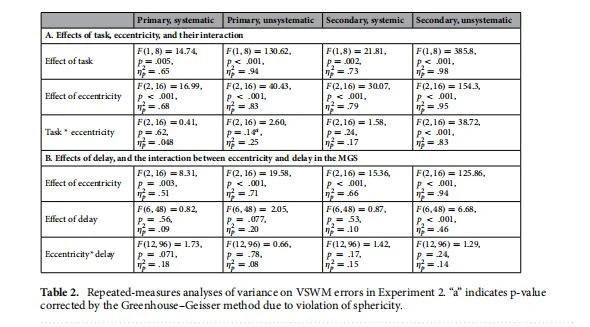
I eksperiment 2 havde vi til formål at replikere resultaterne af eksperiment 1 og yderligere undersøge effekten af retentionsvarighed på VSWM-ydeevne. Vi undersøgte således svarfejl på tværs af en bredere række af forsinkelsesintervaller (0.5, 1, 1.5, 2, 3, 4 og 5 s). Igen afslørede ANOVA'er med gentagne foranstaltninger (Tabel 2A; Fig. 5, øverste række) signifikante hovedeffekter af opgavetype og excentricitet for alle typer fejl og en signifikant interaktion mellem opgave og excentricitet for de usystematiske fejl i de sekundære saccader. Under MGS steg de usystematiske fejl i de sekundære saccader med stigende excentricitet både lineært (t(8)=15.23, p.<.001) and="" quadratically="" (t(8)="−3.98," p=".008);" such="" linear="" and="" the="" quadratic="" increase="" was="" significantly="" greater="" in="" the="" mgs="" than="" the="" vgs="" (linear="" contrast:="" t(8)="7.36,"><.001; quadratic="" contrast:="" t(8)="−3.10," p=".030)." other="" types="" of="" errors="" only="" linearly="" increased="" with="" increasing="" eccentricity=""><.003, data="" not="" shown)="" without="" significant="" quadratic="" trends="" (p's="">.10, data ikke vist).
Effekterne af forsinkelse på VSWM-ydeevne (tabel 2B; Fig. 5, nederste række) svarede til dem, der blev rapporteret i eksperiment 1. Hovedeffekten af forsinkelse på de usystematiske fejl var statistisk signifikant for de sekundære saccader og nærmede sig signifikans for de primære saccader men viste ikke signifikante interaktioner med excentricitet. Post-hoc sammenligninger afslørede signifikante forskelle i de usystematiske fejl mellem 4-s og 0.5-s forsinkelse (t(8)=6.08, s{{10 }}.006) og mellem 4-s og 1.{14}}s forsinkelse (t(8)=4.90, p=.025) for de sekundære saccader . Der var ingen signifikante effekter af forsinkelse eller forsinkelse ved excentricitetsinteraktioner på de systematiske fejl.

Figur 5. Saccade-endepunktsfejl på tværs af opgaver, excentriciteter og forsinkelser i eksperiment 2. Se notationer i fig. 4. Systematiske og usystematiske fejl steg med stigende excentricitet, med en større lineær og kvadratisk stigning i de usystematiske fejl i MGS end VGS . Usystematiske fejl i MGS akkumulerede fra 0.5-s til 5-s forsinkelsesintervaller betydeligt for de sekundære saccader og var trending signifikans for de primære saccader i et lignende mønster på tværs af excentriciteter.
Vi udførte yderligere analyser for yderligere at studere virkningerne af forsinkelse og excentricitet på hukommelsesstyrede saccader. Først indsamlede vi et replikationsdatasæt til eksperiment 2 fra seks tidligere forsøgspersoner for at undersøge, om ydeevnen stabiliserede sig efter omfattende praksis. ANOVA'er med gentagne foranstaltninger afslørede lignende virkninger af excentricitet og forsinkelse i dette replikationsdatasæt (Supplerende Fig. S3; Tabel S1) som dem, der blev observeret i eksperiment 1 og i det første datasæt af eksperiment 2. Især steg usystematiske fejl signifikant og lineært med længere forsinkelse varigheder for både den primære (t(30)=4.20, p=.001) og den sekundære (t(30)=5.62, p<.001) saccades="" as="" in="" experiment="">
For det andet udførte vi analyser på individuelt niveau ved at regressere begge typer MGS-fejl på excentricitet, forsinkelsesvarighed og deres produkt for hver af de ni deltagere (Supplerende Fig. S4; Tabel S2). Excentricitetskoefficienten for den systematiske fejl var signifikant større end nul i de primære og sekundære saccader af to forsøgspersoner, selvom den var større end nul for de usystematiske fejl i seks forsøgspersoners primære saccader og otte forsøgspersoners sekundære saccader. De 95 procent konfidensintervaller (CI) for forsinkelse inkluderede ikke nul for de usystematiske fejl, bortset fra én forsøgspersons primære saccader og tre forsøgspersoners sekundære saccader. Alle 95 procent CI af forsinkelse for de systematiske fejl og de fleste 95 procent CI af produktet af excentricitet og forsinkelse inkluderede ikke nul. Disse individuelle resultater bekræftede gruppeanalysen: i MGS steg usystematiske fejl med større målexcentriciteter og længere forsinkelsesvarigheder, selvom virkningerne af forsinkelse var svagere end excentricitet.
Samlet set viste saccade-endepunktsfejl i MGS i eksperiment 2 også en større stigning i variabilitet med stigende excentricitet (3 til 13 graders synsvinkel) og forsinkelsesvarighed (0.5 til 5 s) end i VGS, og de to faktorer synes at virke uafhængigt af hinanden. I modsætning hertil varierede den systematiske bias ikke på tværs af forsinkelsesvarigheder og steg på tværs af excentriciteter på samme måde i MGS og VGS.
Det simulerede resultat for VSWM på tværs af rum og tid.
Til sidst undersøgte vi de potentielle neurofysiologiske kilder til forsinkelse og excentricitetseffekter på VSWM-fejl. Ved at anvende en 1D-kontinuerlig bump-attraktormodel52 simulerede vi middelværdien og variabiliteten af MGS-endepunkterne på tværs af syv forsinkelser (0,5 til 5 s) og tre excentriciteter (3 til 13 graders synsvinkel) som brugt i eksperiment 2 Antallet af neurale enheder i modellen indekserede kortikal forstørrelse på tværs af synsfeltet (3 grader, 933 neuroner; 8 grader, 402 neuroner; 13 grader, 256 neuroner), baseret på den kortikale forstørrelsesfaktor estimeret i en human retinotopisk kortlægningsundersøgelse55. Vi simulerede 10,000 forsøg for hver kombination af forsinkelse og excentricitet (Supplerende Fig. S5). Som forventet fra den tidligere modellering51, mens de simulerede systematiske fejl ikke viste betydelig variation på tværs af excentricitet eller forsinkelse, viste de simulerede usystematiske fejl betydelige stigninger på tværs af både excentricitet og forsinkelse. Sammenfattende replikerede de simulerede data hovedeffekterne af forsinkelse, men de kunne ikke fange de systematiske fejlmønstre og de uafhængige effekter af excentricitet og forsinkelse på MGS, som vist i adfærdsdataene.

VIRKNINGER AF CISTANCHE-SUPPLEMENT: FORBEDR HUKOMMELSEN
Diskussion
I denne undersøgelse undersøgte vi, hvordan VSWM-repræsentation varierer på tværs af 2D-rum og tid. Vores adfærdsdata viste, at både systematiske og usystematiske fejl i hukommelsesstyrede saccader steg med excentriciteter. Men kun usystematiske fejl viste et kvalitativt anderledes mønster fra visuelt guidede saccader. Disse resultater følger den kortikale forstørrelsesmodel, hvilket indikerer, at de retinotopiske organisationer af den visuelle vej kan begrænse VSWM-repræsentationer. Det er også tydeligt, at usystematiske fejl i hukommelsesstyrede saccader steg med retentionsintervallet i op til 5 s, omend effekten syntes at være mindre robust og mere variabel på tværs af emner end effekten af excentricitet. Vi postulerer, at usystematiske fejl er forbundet med akkumuleret neuronal støj i hukommelsesvedligeholdelse i overensstemmelse med neurofysiologiske modeller, hvorimod systematiske fejl kan stamme fra ikke-hukommelsesbaserede processer såsom sensorimotorisk transformation. Manglen på excentricitet ved forsinket interaktion i MGS antyder yderligere uafhængige mekanismer, der ligger til grund for rumlig og tidsmæssig behandling af VSWM.
Vores eksperimenter viste konsekvent øgede systematiske og usystematiske fejl i hukommelsesstyrede saccader med stigende målexcentricitet. Disse resultater bekræfter tæt med tidligere undersøgelser, der rapporterer større responsfejl med større målexcentricitet hos makaker, der bruger en lignende MGS-opgave7 og hos mennesker, der bruger en opgave, der kræver manuelt kontrollerede museklik for at lokalisere mål i rummet9. I forlængelse af tidligere forskning viser vi yderligere, at variabiliteten af hukommelsesstyrede svar på tværs af excentricitet var ud over en kvantitativ forskel fra visuelt styrede svar. Især usystematiske fejl i MGS steg lineært og kvadratisk med stigende excentricitet sammenlignet med en mindre lineær stigning i fejl i VGS. Disse resultater tyder på, at VSWM-repræsentationer ikke er homogene på tværs af 2D-rummet og er ikke-lineære på tværs af excentriciteter. VSWM-repræsentationer kan have en skarpere overgang fra fovea (<~3°) to="" parafovea=""><~5°) and="" demonstrate="" similar="" properties="" beyond="" parafovea="" (="">~5 grader )32,33,56.
En mulig neural mekanisme, der ligger til grund for VSWM-fejls rumlige heterogenitet, er strukturen af funktionel topografisk kortlægning af rummet i det visuelle system. Retinotopiske egenskaber af den dorsale visuelle vej, såsom kortikal forstørrelse, kan begrænse VSWM-repræsentationer på tværs af synsfeltet på samme måde som at begrænse visuelle perceptuelle og opmærksomhedspræstationer på tværs af rummet36,39,57-59. Spændende nok har tidligere undersøgelser af visuel korttidshukommelse vist et fald i visuel arbejdshukommelseskapacitet for bogstaver med stigende excentricitet fra 4 grader til 10 graders synsvinkel, og effekten blev delvist dæmpet efter omskalering af stimulus i overensstemmelse med den kortikale forstørrelse. faktor 60. Vores resultater af en ikke-lineær stigning i usystematiske fejl på tværs af excentricitet udvider den kortikale forstørrelseshypotese yderligere til VSWM for rumlige placeringer. Som vist i tidligere undersøgelser af perceptuel skarphed39, er den kortikale forstørrelsesfaktor også en ikke-lineær funktion af excentricitet, som viser et gradvist langsommere fald fra excentriciteten på 1,5 grader til 12 graders synsvinkel. De større VSWM-fejl for perifere mål kan stamme fra rumlig heterogenitet af perceptuel behandling i tidlige visuelle regioner. Alternativt kunne det stamme fra en ujævn mnemonisk repræsentation på tværs af rummet i de visuelle regioner på lavere niveau16,17 og i de posteriore parietale og frontale regioner på højere niveau med yderligere forvrængning i deres retinotopiske organisation10,44. På samme måde kan kortikal forstørrelse af de tidlige visuelle regioner begrænse både perceptuel kodning og mnemonisk vedligeholdelse af rumlig information i det perifere synsfelt. Hvordan præcist kan kortikal forstørrelse påvirke VSWM-præcision på tværs af rummet? Der er mindst to mekanismer, herunder en nedsat kortikal forstørrelsesfaktor og øget receptiv feltstørrelse, når målexcentriciteten stiger38,40,41,61,62. Da celletætheden i den centrale visuelle repræsentation af V1 er nogenlunde den samme63 som eller endda højere64 end den i den perifere repræsentation, betyder fald i kortikal forstørrelsesfaktor med excentricitet flere neuroner dedikeret til foveal behandling.
Som illustreret i de tidligere modelleringsstudier51 og i vores simuleringsdata (Supplerende Fig. S5), ville et mindre antal neuroner i et lokalt VSWM-mikrokredsløb øge den stokastiske drift i populationsaktiviteten og dermed øge variansen af netværksoutput. Det er muligt, at den større usystematiske fejl med stigende excentricitet i vores MGS-data er den adfærdsmæssige manifestation af den kortikale forstørrelsesfaktor og variabilitet i tilbagevendende netværksaktivitet på tværs af cortical space. Derudover kan større receptiv feltstørrelse også reducere kvaliteten af VSWM-repræsentation i periferien, da en bred rumlig tuning kan reducere præcisionen af både kodning og vedligeholdelse af VSWM. Fremtidige undersøgelser kan yderligere undersøge, hvordan størrelsen af hukommelsesfeltet i bump-attraktor-netværket påvirker VSWM-fejl ved systematisk at variere strukturen og styrken af den excitatoriske og hæmmende synaptiske transmission. Den anden vigtige observation er det forskellige tidsforløb af systematiske og usystematiske fejl over forsinkelsen. Vi fandt en ophobning af usystematiske fejl i hukommelsesstyrede saccader, da forsinkelsesperioden blev forlænget i op til 5 s, hvorimod en mere tilfældigt fordelt systematisk fejl over tid. Det stemmer overens med mange tidligere undersøgelser af arbejdshukommelse, der viser, at jo længere retentionsintervallet er, jo større er variabiliteten af hukommelsesgenkaldelse for farve65,66, orientering48,66,67, ansigtsstimuli66 og rumlig placering8,47. I modsætning hertil varierer den gennemsnitlige genkaldelsesfejl for rumlige mål ikke signifikant med forsinkelsesvarigheden6,8,47.
Vores resultater replikerede og udvidede især den rumlige arbejdshukommelsesundersøgelse af White og kolleger8, som brugte et lignende MGS-paradigme i makakaber. Sammenlignet med mønstre af usystematiske fejl på tværs af 2D-rummet, syntes forsinkelsesrelaterede fejlmønstre imidlertid at vise større individuelle forskelle og virkede uafhængige af excentricitet. Ikke desto mindre var effekten af forsinkelsen stabil på tværs af flere sessioner og gengivet i replikationsdatasættet (Supplerende Fig. S3). Hvad er det neurale substrat for den forringede hukommelsespræcision over tid, som afspejlet af den øgede genkaldelsesvariabilitet med længere forsinkelsesvarigheder? Repræsentationen af VSWM indhold eller mål er forbundet med vedvarende neural aktivitet observeret i distribuerede kortikale og subkortikale regioner under hukommelsesforsinkelsen15, og variabilitet af vedvarende neural aktivitet under forsinkelsen kan ligge til grund for adfærdsresponsvariabiliteten i individuelle forsøg5,52,68,69. Denne neurale variabilitet akkumuleres gradvist over tid, forbundet med forringelsen af hukommelsesrepræsentation med øget retentionsinterval52. Som modelleret af tidligere undersøgelser51 og nærværende undersøgelse (Supplerende Fig. S5), i en bump-attraktor-model, øges den tilfældige drift af befolkningens neurale aktivitet over tid i fravær af eksterne sensoriske input, hvilket øger usystematiske, ikke systematiske fejl med længere forsinkelse varigheder. Ud over de lokale tilbagevendende mikrokredsløbsmekanismer kan andre neurale mekanismer, såsom kortsigtet synaptisk plasticitet70-72, også tage højde for ændringer i hukommelsespræcision over forsinkelsen. Mens usystematiske fejl kan stamme fra hukommelsesrelaterede processer, synes systematiske fejl mindre afhængige af hukommelsesvedligeholdelse. Her fandt vi ud af, at systematiske fejl ikke akkumulerede over forsinkelsesintervallerne i vores adfærdsmæssige fund og beregningssimulering. Desuden har systematiske fejl vist sig at variere med lysstyrken i rummet8, indledende hoved- og øjenpositioner6 og post-sakkadisk feedback7. Systematiske fejl kan derfor stole på en ikke-hukommelsesbaseret mekanisme, såsom en støjende sensorimotorisk transformationsproces, der unøjagtigt oversætter retinotopiske signaler til de motoriske kommandoer6. Især viste en undersøgelse73, at udladningsaktiviteterne fra de collicular saccade-relaterede burst-neuroner er ens i en nøjagtig visuelt guidet saccade og en unøjagtig hukommelsesstyret saccade, hvilket indikerer, at systematiske fejl kan opstå som følge af tilføjelse eller udeladelse af signaler, der er nedstrøms fra superior colliculus.
Disse signaler kan relatere til kinematiske begrænsninger på saccadegenerering74, såsom en kompensation af præsakkadisk orbital position, men den nøjagtige rolle af sådanne signaler i generering af systematiske fejl i hukommelsesstyrede svar forbliver uklar. Ikke desto mindre kunne vi ikke udelukke, at systematiske fejl stammer fra andre kortikale regioner involveret i rumlig behandling og sensorimotorisk transformation såsom FEF75 og IPS76,77. For eksempel har FEF vist sig at demonstrere en kvadrantmæssig neural organisation, muligvis relateret til en systematisk skævhed af hukommelsesresponser mod midten af kvadranten10. Selvom vores hovedresultater understøtter en hukommelsesbaseret teori om usystematiske fejl og en ikke-hukommelsesbaseret teori om systematiske fejl, er det vigtigt at bemærke andre muligheder. Sensorimotoriske transformationer kan også spille en rolle i akkumuleringen af responsvariabilitet overarbejde under den tidlige forsinkelse6 eller i hele forsinkelsesperioden75.

CISTANCHE EKSTRAKT: FORBEDR HUKOMMELSEN
Det er også uvist, om systematiske fejl kan relateres til hukommelsesvedligeholdelse i nogle situationer. Systematiske fejl kan øges væsentligt efter 5 s, det længste forsinkelsesinterval, vi brugte. Desuden er det blevet vist, at de gennemsnitlige genkaldelsesfejl for orientering48,49 eller farve50 steg over hukommelsesforsinkelser, når flere elementer blev præsenteret, og når elementerne blev aktivt vedligeholdt i hukommelsen50. Flere undersøgelser er nødvendige for at undersøge, hvor, hvornår og hvordan systematiske og usystematiske fejl opstår. Rumlige arbejdshukommelsesparadigmer, der ikke er afhængige af sansemotorisk transformation, såsom en forsinket match-til-prøve-opgave78, kan være et godt alternativ til at teste adfærdsfejls afhængighed af hukommelsesvedligeholdelse. Undersøgelse af systematiske og usystematiske fejl af VSWM i kliniske modeller som Parkinsons sygdom79 og skizofreni80 kan også fremme forståelsen af arten af adfærdsfejlene og kunne potentielt hjælpe med at udvikle adfærdsmarkører til at hjælpe med diagnosticering af disse lidelser. Et andet spændende fund i denne undersøgelse er forskellen mellem primære og sekundære saccader. Samlet set viste sekundære saccader en mere robust opgave ved excentricitetsinteraktion og virkning af forsinkelse sammenlignet med primære saccader. Det er muligt, at primære og sekundære saccader afspejler forskellige komponenter i VSWM. Primære saccader kan være tættere knyttet til en indledende motorisk plan, hvorimod korrigerende saccader i højere grad kan afspejle kvaliteten af VSWM-repræsentationen81-83.
Som sådan kan fejl i de primære hukommelsesstyrede saccader involvere motoriske fejl, der ikke kan differentieres fra de visuelt guidede svar, hvilket forklarer den svagere interaktion mellem opgave og excentricitet. Konsekvent kan en mindre forsinkelseseffekt på de primære saccader indikere konstante motoriske fejl på tværs af forsinkelser. Endelig fandt vi ringe eller ingen interaktion mellem excentricitet og forsinkelse, hvilket tyder på, at den rumlige og tidsmæssige behandling af VSWM kan være stort set uafhængig. Det er muligt, at VSWM-vedligeholdelse over tid relaterer sig til lokal neural dynamik, såsom den stokastiske drift af den neurale aktivitet simuleret af bump-attraktor-modellen. I modsætning hertil er VSWM-repræsentation på tværs af rummet sandsynligvis begrænset af en mere global neural mekanisme, såsom den langrækkende, topografiske kortlægning inden for og på tværs af kortikale regioner. En sådan kontrast mellem de lokale og globale mekanismer kan forklare invariansen af systematiske fejl på tværs af forsinkelser og excentricitet ved forsinkelsesinteraktioner i de simulerede data (Supplerende Fig. S5), da modellen kun fanger lokal neural dynamik, men ikke ændringer i interregional og intra- regional topografi. Fremtidige modeller bør inkorporere både lokale og globale mekanismer til at simulere rumlig heterogenitet i VSWM-behandling.
For eksempel ville opbygning af en todimensionel VSWM-model, der inkorporerer den intraregionale (ikke-)topografiske organisation langs den dorsale visuelle vej målt ved fMRI22 eller elektrofysiologi10 være afgørende for at forstå VSWM-behandling på tværs af rummet. Desuden kan kredsløbsmodeller i stor skala integreres yderligere med topografiske faktorer, såsom interregionale topografiske forbindelser84 og cortico-kortikal prøveudtagning85, for bedre at fange rumlig behandling i VSWM. Sammenfattende viser den foreliggende undersøgelse, hvordan saccade-endepunktsfejl varierer på tværs af todimensionelt rum og tid ved hjælp af en oculomotorisk forsinket responsopgave hos menneskelige forsøgspersoner. Vi observerede forskellige tidsforløb af systematiske og usystematiske fejl over retentionsintervallet, hvor de systematiske fejl fluktuerede tilfældigt, hvorimod de usystematiske fejl så ud til at akkumulere i op til 5 s. Vi foreslår, at usystematiske fejl, ikke systematiske fejl, afspejler mere på hukommelsesrelaterede processer. Vi fandt også en stigning i systematiske og usystematiske fejl med stigende målexcentricitet. Interaktionen mellem excentricitet og opgave var signifikant for usystematiske fejl, hvilket indikerer en potentiel begrænsning af den retinotopiske organisation på VSWM-repræsentation. Endelig antyder manglen på interaktion mellem excentricitet og forsinkelse potentielt forskellige mekanismer for VSWM-behandling på tværs af rum og over tid.


